
薬物療法を含む、身体へ働きかける治療を述べるにあたって、脳の仕組みや、遺伝の仕組みについて簡単に説明します。なるべくきちんと原理的に理解できた方が、治療を考える上で役に立つと考えるからです。
 Dr.ラクダ
少し堅苦しいことを書きますが、原理的に理解できた方が、色々と理解が深まると思ってこの章を書きます。参考にして下さい。
5.1 脳の構造と神経細胞
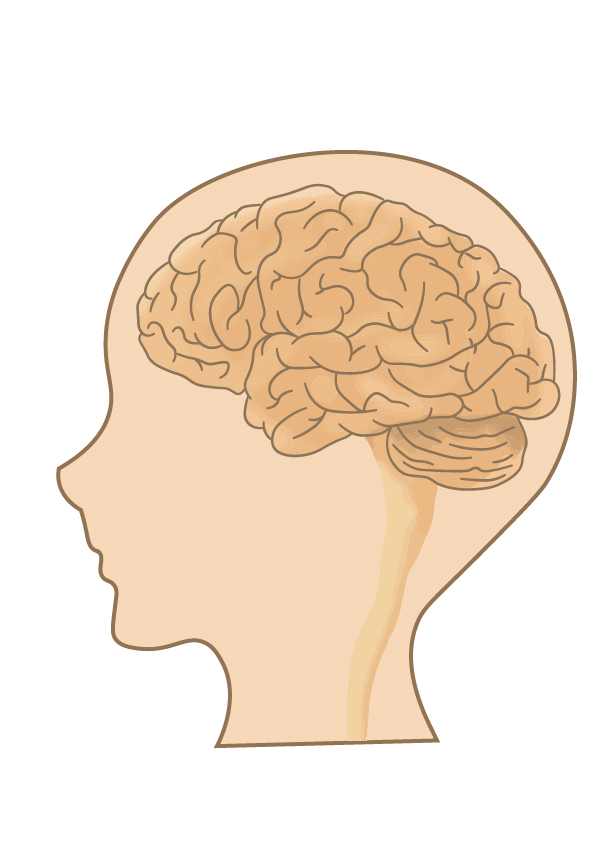
私たちが考えたり、感じたり、行動したりするときには、脳のさまざまな部分が働いています。ここでは、まず脳を構成する細胞を見て、その後、脳の各部位と脊髄、自律神経系へと話を進めます。
脳には、部位ごとに得意な働きがあります。ただし、「この場所だけが記憶を担当する」「この場所だけが感情を生む」というほど単純ではありません。多くの機能は、いくつもの部位がつながったネットワークによって支えられています。
5.1.1 脳の中の細胞
Dr.ラクダまずは細胞から見ていきましょう。
5.1.1.1 神経細胞(ニューロン)
「脳」の働きによって「心」が生まれると、以前に書きました。では、脳は何でできているのでしょうか。脳には、情報をやり取りする神経細胞(ニューロン)と、その活動をさまざまな形で支えるグリア細胞があります。血管を構成する細胞なども、脳の働きに欠かせません。
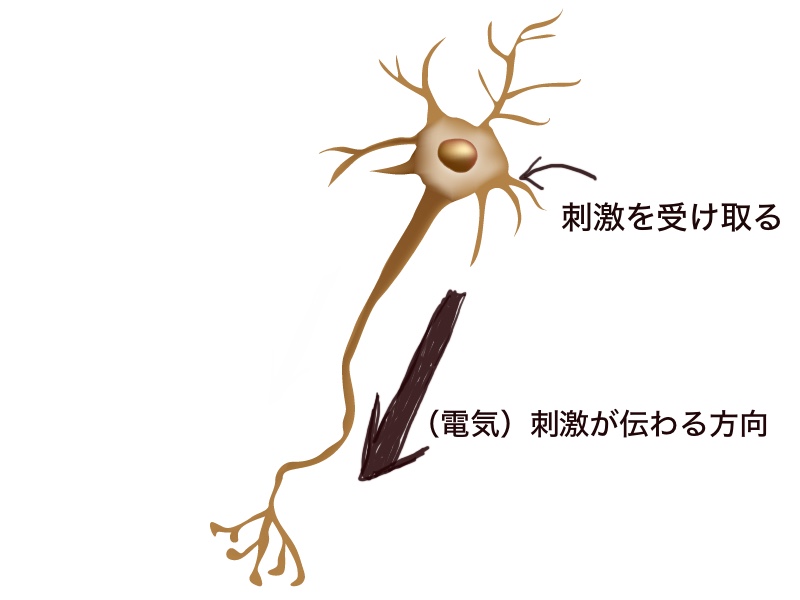
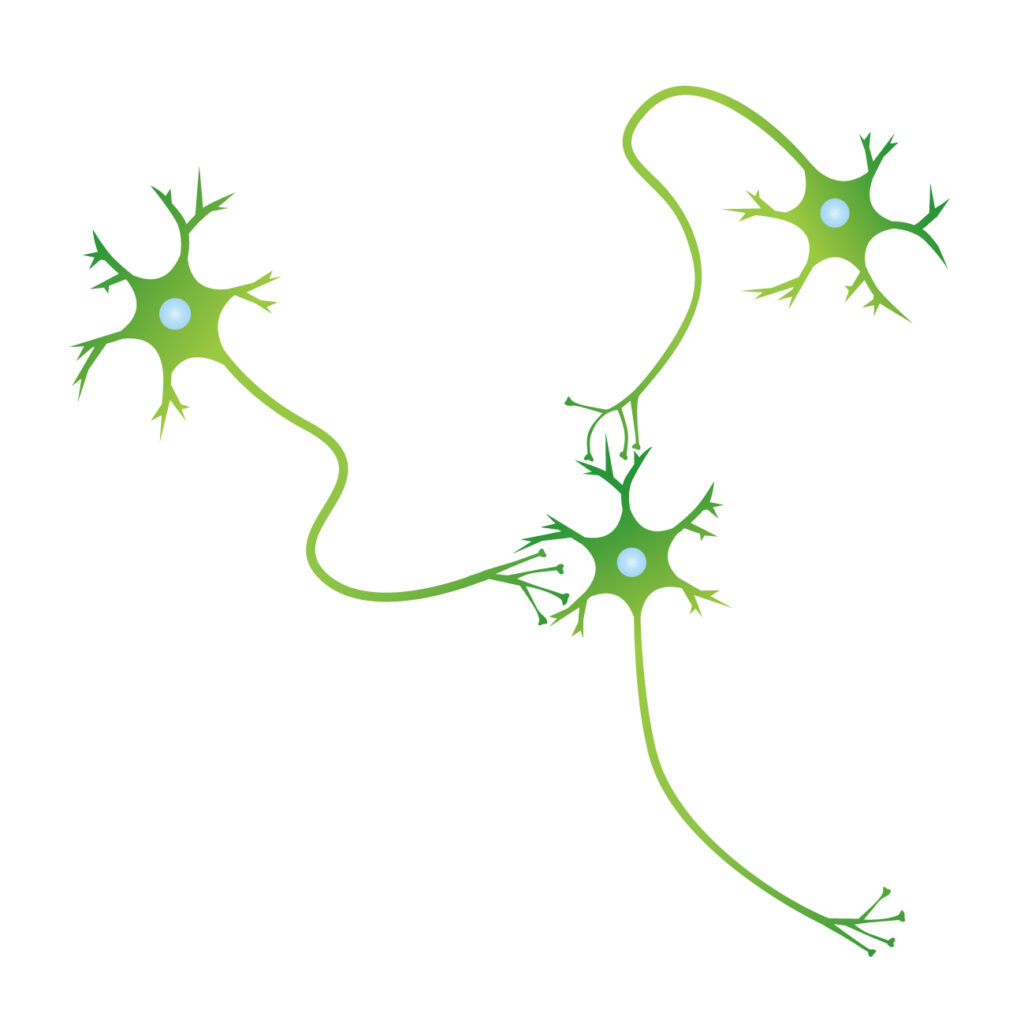
典型的なニューロンには、細胞体、樹状突起、軸索があります。樹状突起や細胞体などで他の細胞からの信号を受け取り、それらの影響が統合されます。その結果、軸索の始まり付近で活動電位という電気信号が生じると、通常は軸索を通って神経終末へ伝わります。
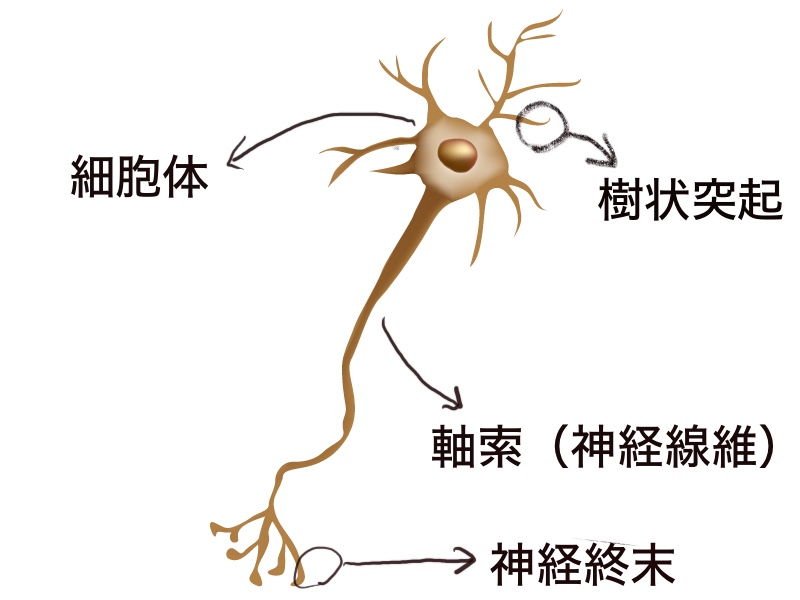
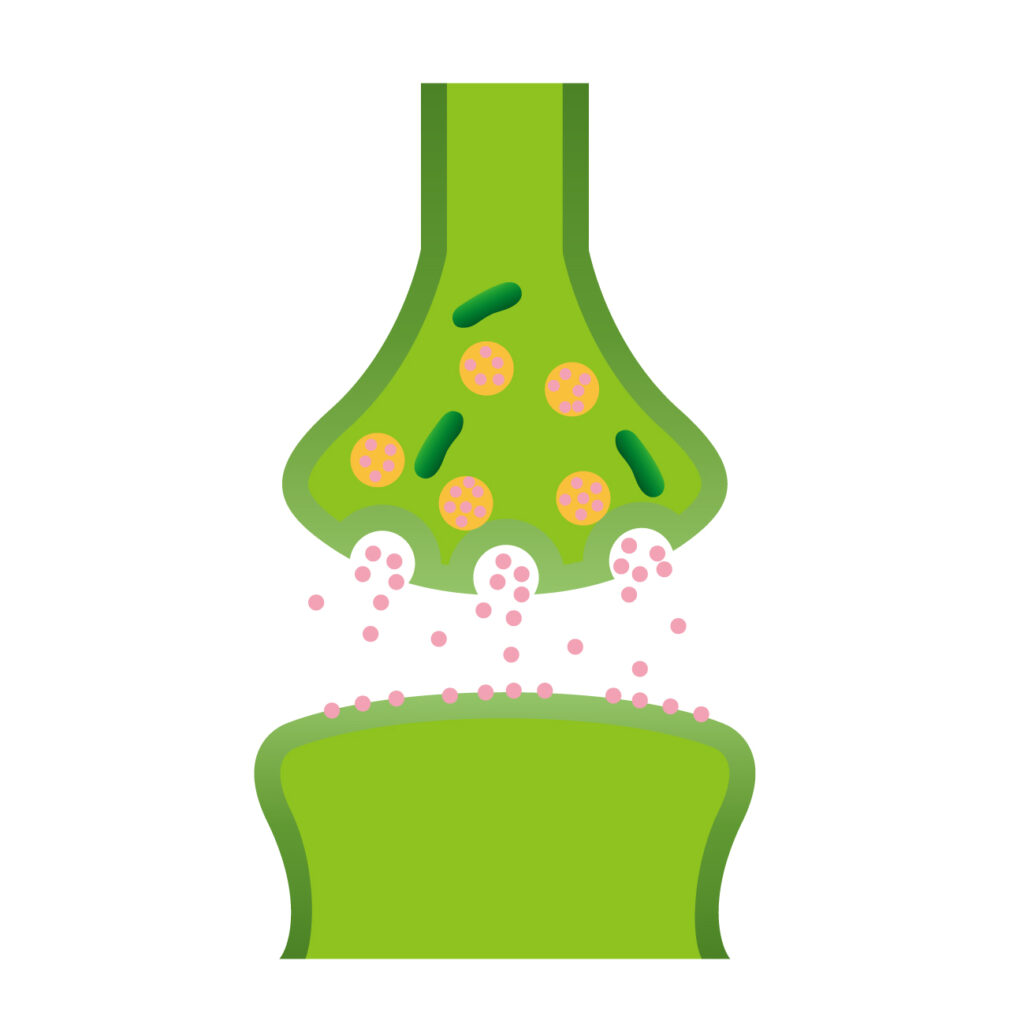
多くの神経細胞の接点は、化学シナプスです。神経終末に活動電位が到達すると、神経伝達物質が放出され、次の細胞の受容体に作用します。こうして、電気的な信号が化学的な信号を介して次の細胞に伝えられます。次の細胞を活動しやすくする信号も、活動しにくくする信号もあります。
化学シナプスでは、基本的に送り手から受け手へ情報が伝わります。ただし、すべての神経信号が同じしくみで伝わるわけではなく、細胞同士を電気的につなぐ電気シナプスなどもあります。ここでは、典型的な化学シナプスを中心に考えましょう。
神経細胞と言っても細胞の一種です。
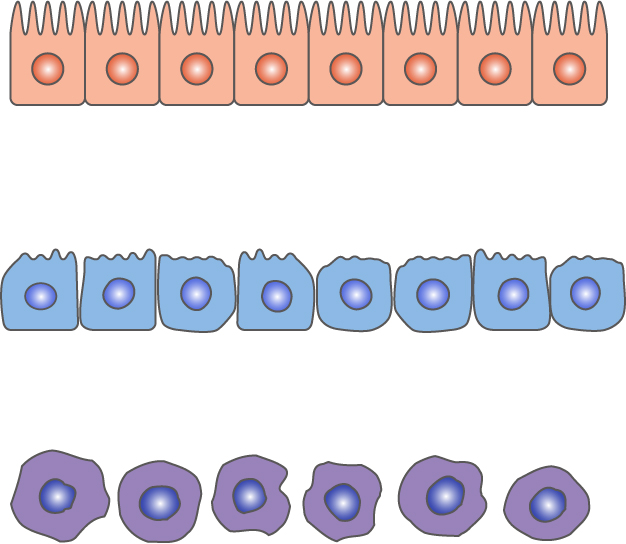
細胞の図を示しましたが、色々な細胞がある中で、神経細胞は、特殊な役割があり、以下のような構造をしています。電気信号を伝える役割があります。電気信号の刺激を受け取り、次に伝えるのです。
主に樹状突起で刺激を受け取り、軸索を電気刺激が伝わっていきます。刺激の伝達は、(原則)一方向性です。神経終末まで刺激が伝わると、神経伝達物質を放出して、次の神経細胞に刺激を伝えます。
この神経細胞が、リレーをして電気信号を伝えてゆくわけです。この刺激のリレーには、スタートやゴールが無く、ぐるぐると回っている印象です。
 レッサーちゃん
ぐるぐる電気的興奮が回っているのね!
5.1.1.2 アストロサイト(星状膠細胞:アストログリア)
脳には、ニューロン以外の細胞もあります。グリア細胞と言って、過去にはニューロンの間を物理的に埋める、「つなぎ」みたいな働きをしていると思われていた細胞群があります。「膠(こう)細胞」と言っていました。「膠(にかわ)」とは、昔、糊のように接着剤として使っていたものです。グリアの語源、ギリシャ語の「glia」も英語で「glue」となり、現在も「接着剤」の意味で使われています。最近では、色々と重要な機能を果たしていることが分かってきました。
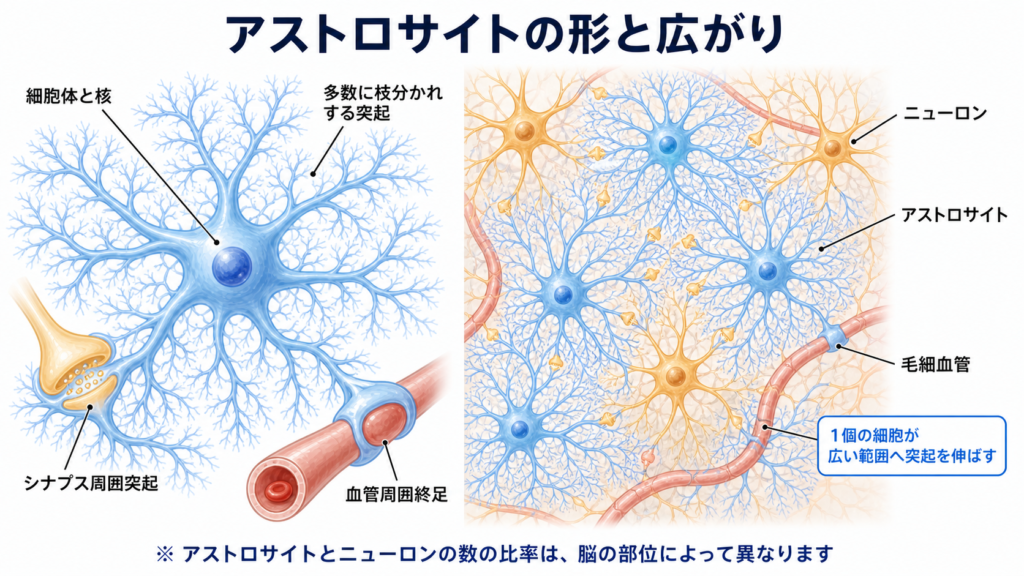
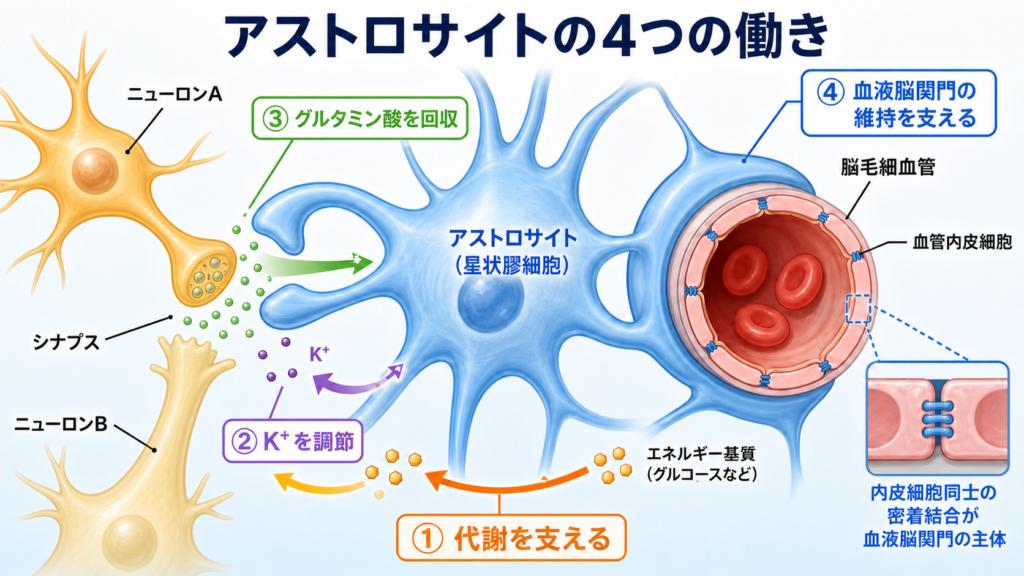
グリア細胞の一種であるアストロサイトは、血液脳関門(後述)の形成や維持のサポートやニューロンのエネルギー代謝を補助します。細胞外の過剰なカリウムイオンを取り込み、神経伝達物質グルタミン酸の回収することでニューロンが働きやすい環境を整えます。最近、注目を浴びていて、新しい発見が期待されている細胞です。
5.1.1.3 オリゴデンドロサイト(乏突起膠細胞)
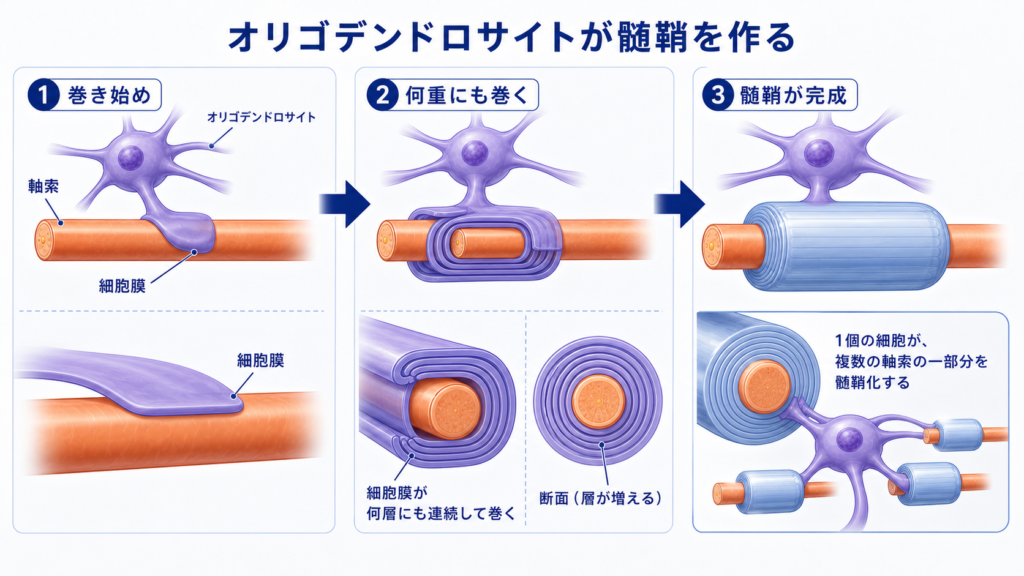
オリゴデンドロサイトは、中枢神経系で髄鞘を作るグリア細胞です。細胞から伸びた突起の膜がニューロンの軸索へ何層にも巻き付き、電気的に絶縁します。この多層の膜構造を、髄鞘(ミエリン)と呼びます。髄鞘は脂質とタンパク質に富んでいます。
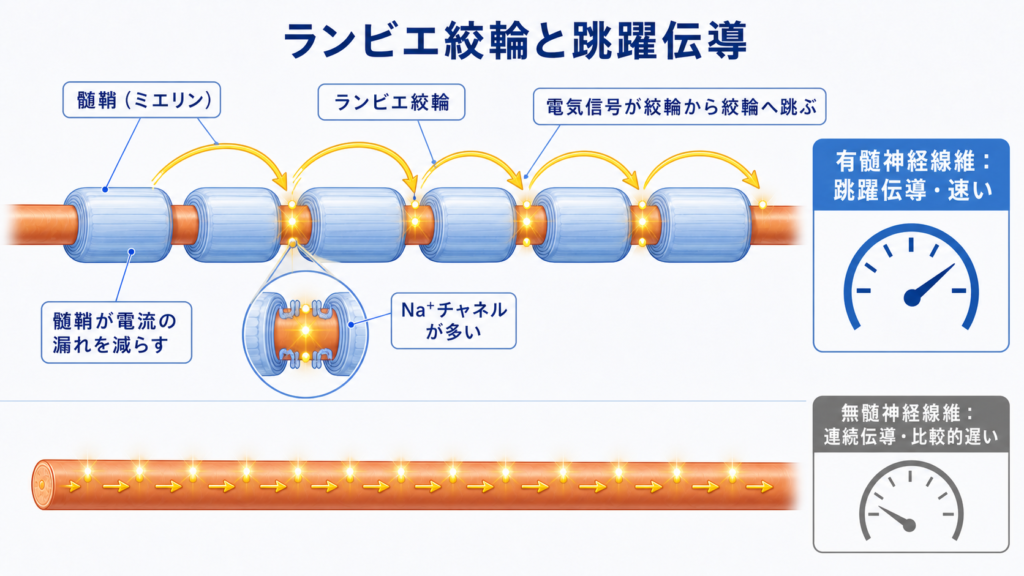
髄鞘は軸索全体を切れ目なく覆うのではなく、一定の間隔を空けて並んでいます。髄鞘と髄鞘の間にある、軸索膜が露出した短い部分を「ランビエ絞輪」と呼びます。ランビエ絞輪には電位依存性Na⁺チャネルが高密度に集まっており、活動電位は主にこの部分で再生されます。
髄鞘は軸索からの電流の漏れを減らすため、電気信号は一つのランビエ絞輪から次の絞輪へ飛び移るように伝わります。これを「跳躍伝導」といい、同じ程度の太さの軸索では、無髄神経線維における連続伝導よりも速く、エネルギー効率にも優れています。髄鞘で覆われた軸索を「有髄神経線維」と呼びます。
一つのオリゴデンドロサイトは複数の突起を伸ばし、複数の軸索のそれぞれ一部分を髄鞘化できます。多発性硬化症は、中枢神経系の髄鞘などが免疫機序によって障害される炎症性脱髄疾患です。なお、脳以外の抹消神経系で髄鞘を作るのはシュワン細胞と言われる細胞です。
5.1.1.4 ミクログリア
 Dr.ラクダ
ミクログリアは、免疫系の細胞で、ニューロンやグリア細胞とは、出身が異なります。
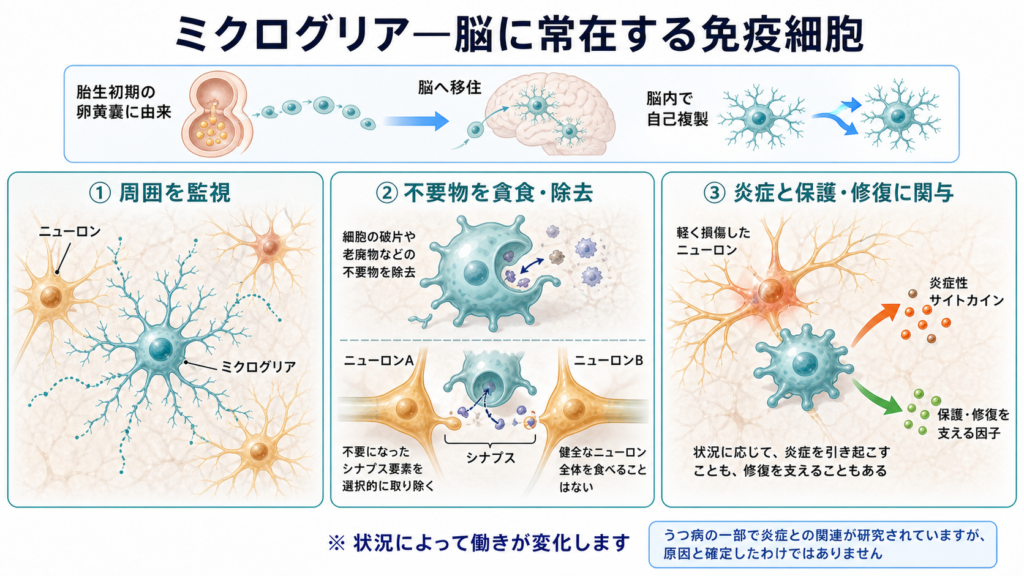
ミクログリアは、脳や脊髄に常在する免疫細胞です。ニューロン、アストロサイト、オリゴデンドロサイトなどが神経外胚葉に由来するのに対し、ミクログリアは中胚葉系の細胞です。胎生初期に卵黄嚢で生じる原始的な骨髄系前駆細胞に由来し、血液中を循環する単球とは発生学的に区別されます(過去には、血液の中の白血球の一種である単球由来という説がありました。現在は、胎生期に脳に移住した中胚葉系の細胞が脳に定住して、そこで増殖したり、死んだりしているという説が有力です。主に動物の研究で示されています)。脳へ移住した後は、主に脳内で自己複製することによって維持されます。
ミクログリアは、突起を絶えず動かして周囲の状態を監視しています。損傷した細胞や細胞の破片などを貪食して除去するほか、脳の発達、シナプスの形成や除去、組織環境の維持にも関与します。感染や損傷が起こると状態を変化させ、サイトカインなどを放出します。その働きは炎症を促進する場合もあれば、組織の保護や修復に関与する場合もあります。
近年、うつ病の一部では、炎症や免疫系の変化が病態に関与する可能性が研究されています。ミクログリアの状態変化が関係する可能性もありますが、すべてのうつ病を炎症だけで説明できるわけではなく、ミクログリアが直接の原因であると確定しているわけでもありません。
5.1.2 灰白質と神経核
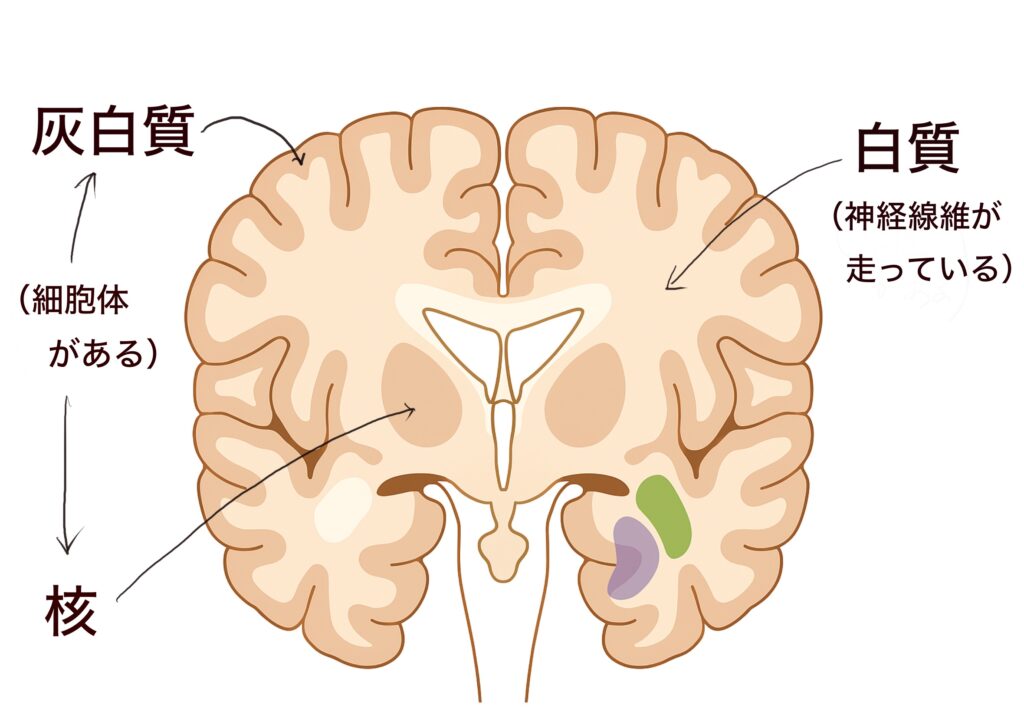
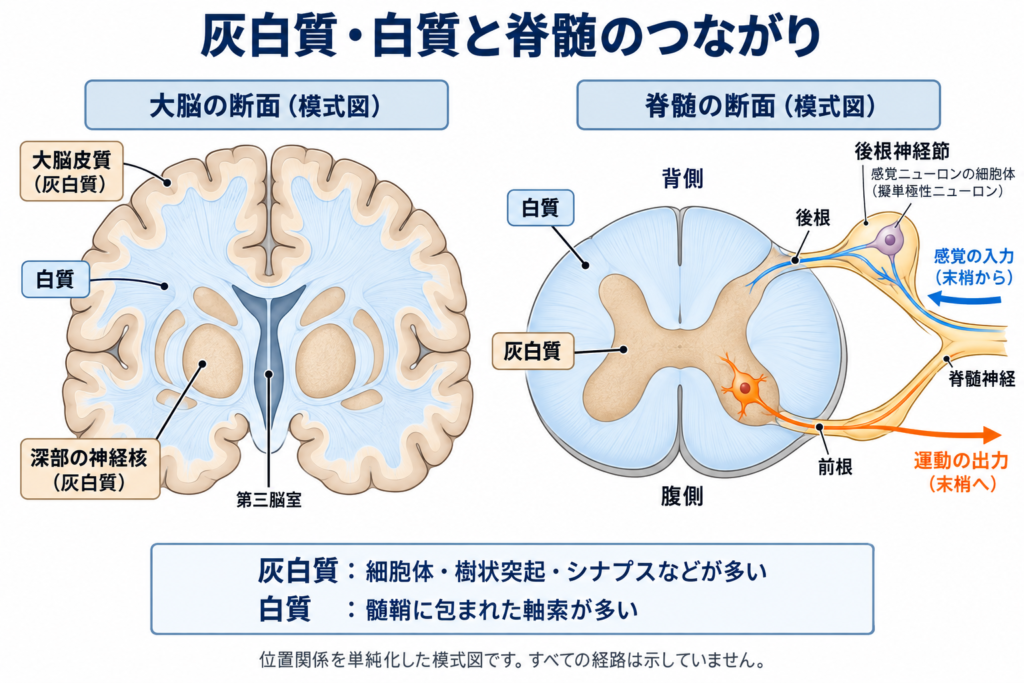
ニューロンの細胞体、樹状突起、シナプスなどが多い領域を「灰白質」と呼びます。グリア細胞や血管、軸索も含まれています。
大脳の表面を覆う大脳皮質は、灰白質の一つです。餃子にたとえるなら皮の部分に当たります。ただし、灰白質は表面だけにあるわけではありません。脳の深部にも細胞体が集まった「神経核」があり、大脳基底核や扁桃体などがその例です。小脳や脳幹、脊髄にも灰白質があります。
ここでいう「核」は細胞の中の核ではなく、神経細胞の集まりを意味します。
5.1.3 白質
髄鞘をもつ軸索が多く走る領域を「白質」と呼びます。髄鞘に脂質が多いため、白っぽく見えます。白質は、脳の部位同士や、脳と脊髄の間を結ぶ連絡路として働きます。白質にもグリア細胞や血管などがあります。
大脳では表面に灰白質の皮質、その内側に白質が広がり、さらに深部の神経核があります。
5.1.4 中枢神経系の大きな分類
下の図を見てください。脳と脊髄を合わせて中枢神経です。脳には、大脳半球と、その中心部の間脳(視床や視床下部など)、その下に脳幹、その後ろに小脳、脳幹の下に脊髄がつながっています。

5.1.4.1 担当領域
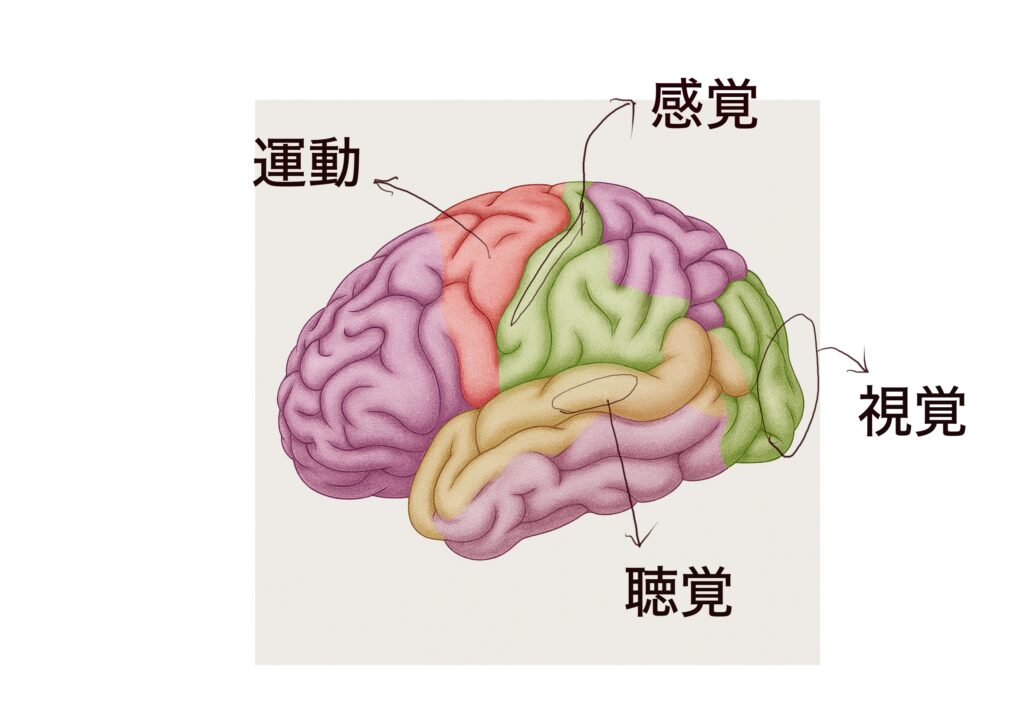
そして脳の場所によって、担当する機能が分かれていきます。視覚領域、聴覚領域、運動領域などです。脳卒中(血管が詰まったり、破れたり)して、特定の部分が障害を受けると、失語が出たり、半身麻痺が出たりするのは、このためです。白質の損傷でも、連絡路がダメージを受け、症状が出現します。以下に代表的な部分の領域を示します。もちろん、この領域だけでその機能が完結するわけではありません。連絡を取り合いながらその機能を発揮します。その中で、非常に重要な役割を果たしているという意味です。
5.1.5 大脳
大脳から見ていきましょう。
5.1.5.1 大脳皮質の分類
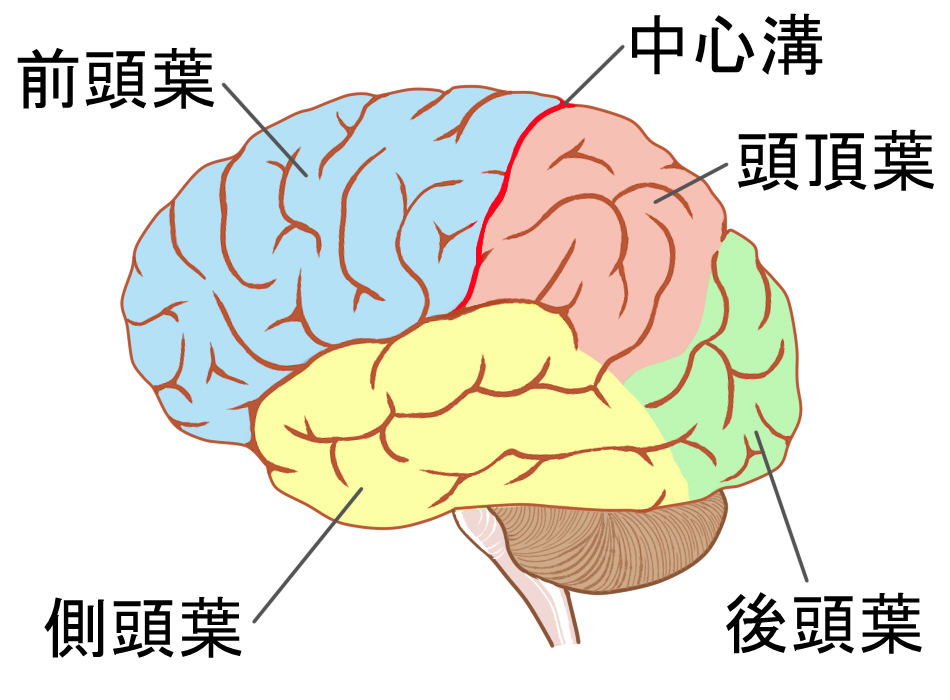
大脳を餃子にたとえたら、皮に相当する表面の部分が大脳皮質です。溝を目印に、前頭葉・頭頂葉・後頭葉・側頭葉などに分けられます。また、外側からは隠れて見えない島皮質もあります。
5.1.5.1.1 前頭葉
大脳皮質の前方を「前頭葉」と言います。頭のてっぺんの部分の頭頂葉との境に「中心溝」という溝があります。
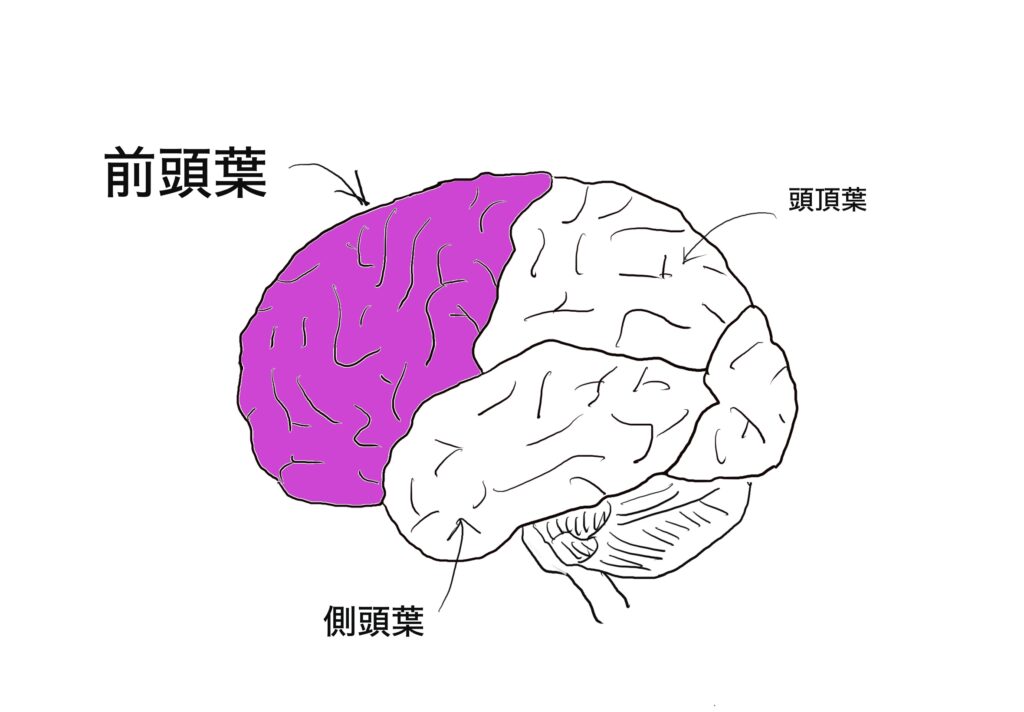
前頭葉は大脳の前方にあり、中心溝を境に頭頂葉と接しています。中心溝のすぐ前にある中心前回には、一次運動野があります。ここは随意運動に重要で、障害されると主に反対側の体に運動麻痺が生じることがあります。
一次運動野の前方には、運動の準備や組み立てに関係する運動前野、補足運動野などがあります。さらに前方には前頭前野があり、計画、判断、目標に沿った行動の調節などに関与します。
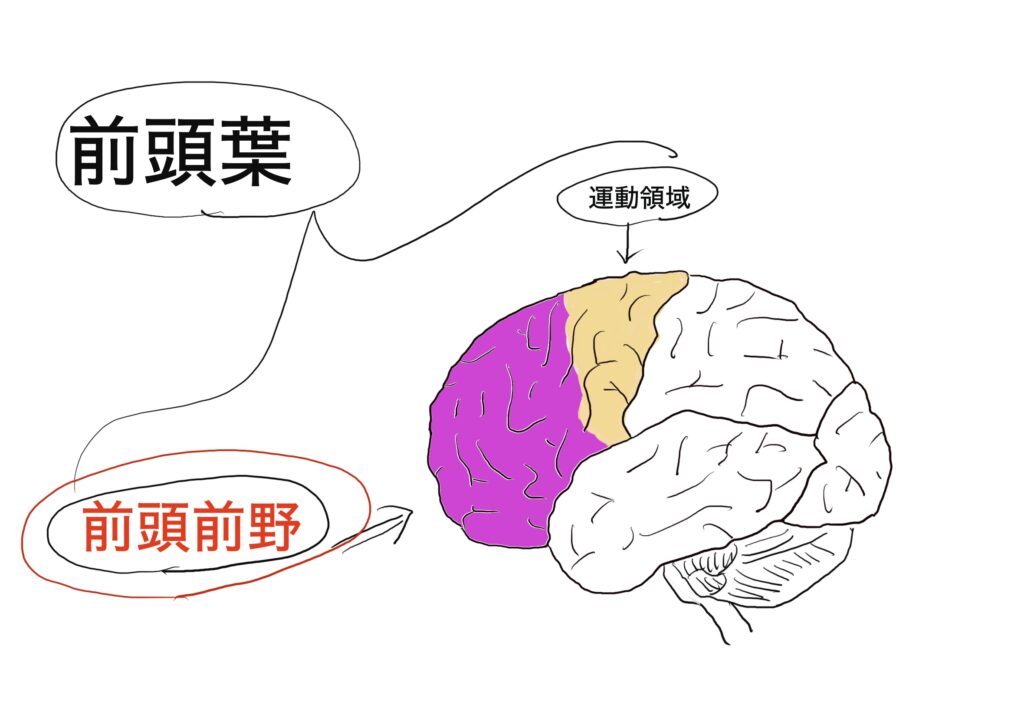
5.1.5.1.1.1 背外側前頭前野(DLPFC)
Dr.ラクダここは、最近注目されている領域です。
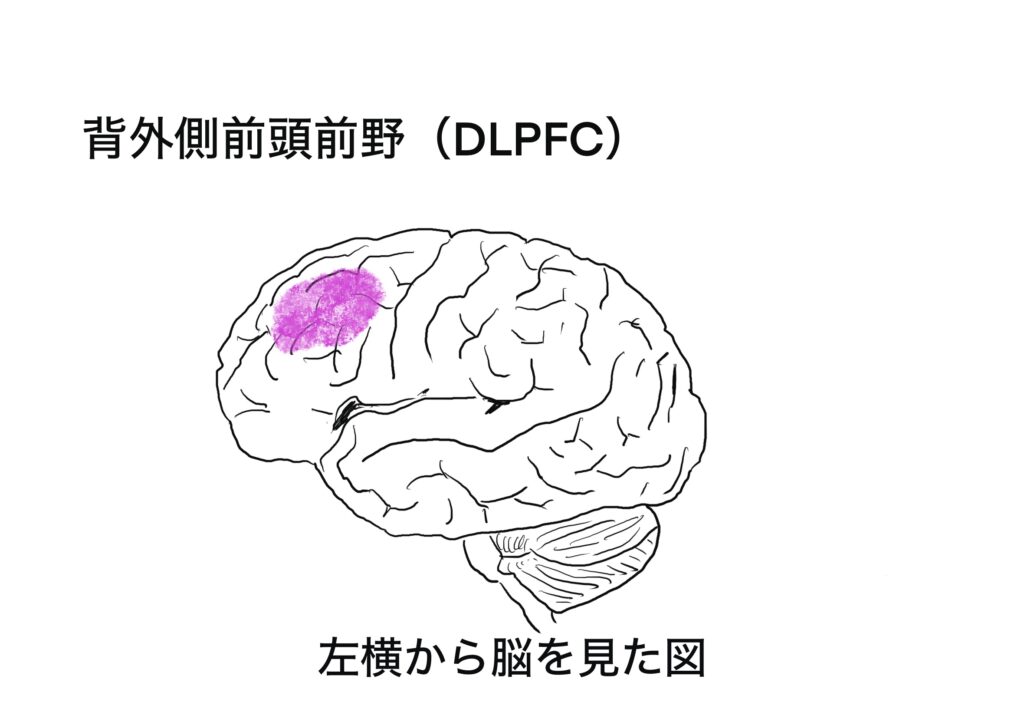
そして前頭前野の中にもいくつか領域があり、下図のような領域を「背外側前頭前野(DLPFC)」と呼ばれています。意識の集中(主に持続的に集中すること)や、物事の段取りを考えたりする「実行機能(遂行機能とも呼ばれる)」を司るとされています。また、言われたことを短期間憶えておき、それを用いて作業をする(暗算など)ワーキングメモリーにも重要な役割を果たすと言われています。

5.1.5.1.1.2 腹内側前頭前野(vmPFC)
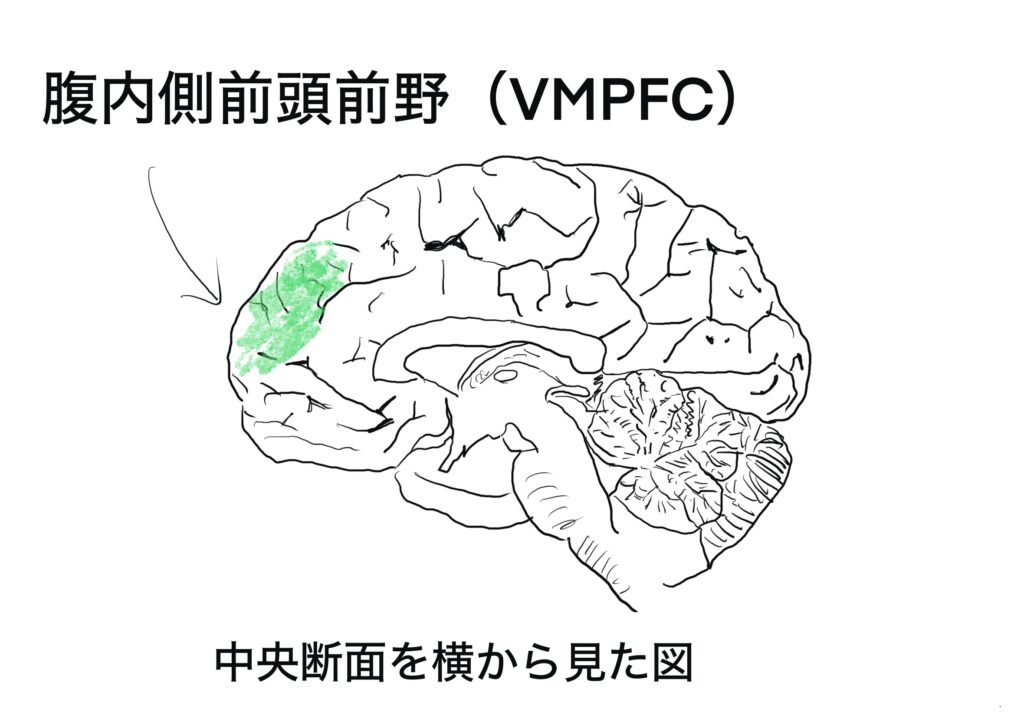
下図のような部分を腹内側前頭前野(VMPFC)」と呼んでいます。前頭前野の内側・下方にある領域です。経験や感情、報酬の価値などを踏まえた意思決定に関わるとされています。

5.1.5.1.1.3 眼窩前頭皮質(OFC)
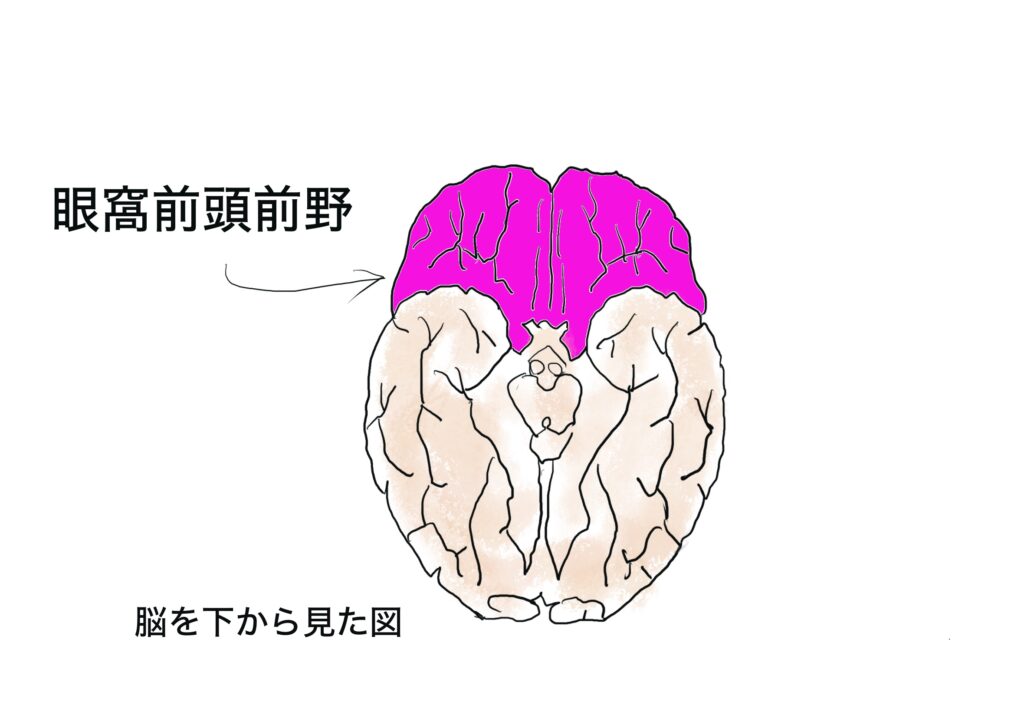
下図のように、前頭葉を下から見上げた部分にある「眼窩前頭前野(OFC)」と呼ばれる部位があります。報酬や罰の価値を評価し、状況が変わったときに選択や行動を更新する働きなどに関与します。衝動的な行動や強迫的な行動にも関係しますが、これらを一か所だけで制御しているわけではありません。

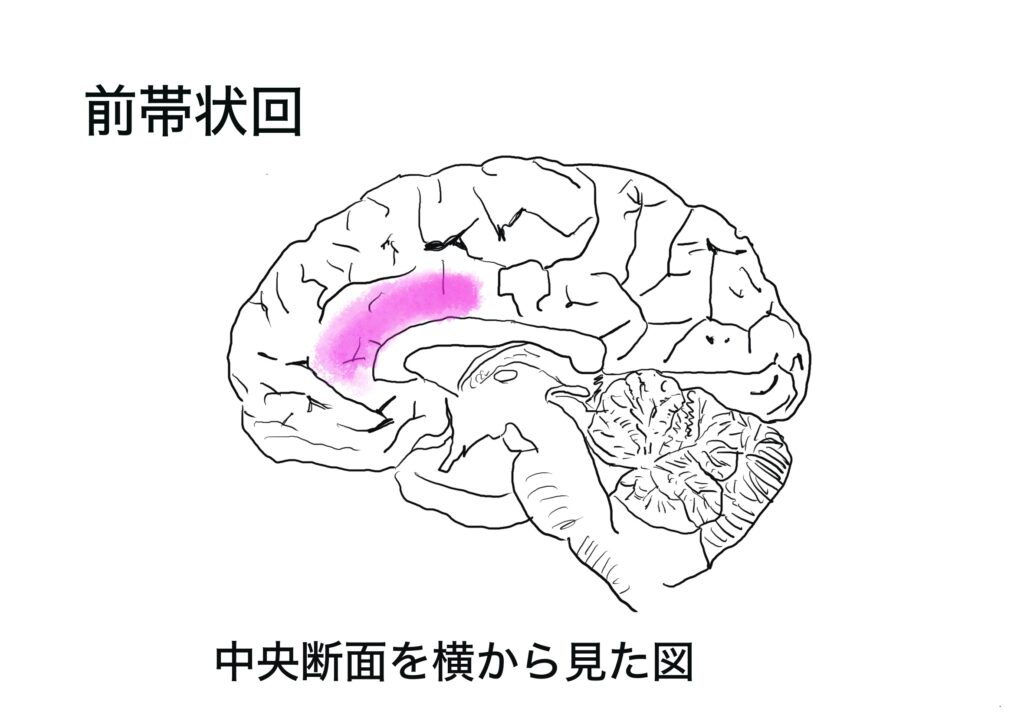
5.1.5.1.1.4 前帯状皮質(ACC)
帯状回という部分が脳梁の上にあります。帯状回は、左右の大脳半球をつなぐ脳梁の上方から、その前方を回り込むように位置しています。その前方の前帯状皮質は、前頭前野などと連携し、注意、葛藤や結果の評価、動機づけ、自律神経反応の調節などに関わっているとされています。
5.1.5.1.2 頭頂葉
脳のてっぺんの後半部分になります。中心溝の後ろにある中心後回には、一次体性感覚野があります。触られた場所や、体の各部の位置などの情報の処理に関わります。障害されると、感覚が低下したり、刺激の位置や性質を識別しにくくなったりすることがあります。
頭頂葉は、視覚や体性感覚などを組み合わせて、周囲の空間や自分の体の位置を把握する働きにも関与します。

5.1.5.1.3 後頭葉
大脳の後方にあり、視覚情報の処理に重要です。一次視覚野で処理された情報は、側頭葉や頭頂葉などにも伝わり、物の形や動き、位置などの認識につながります。

5.1.5.1.4 側頭葉
大脳の側面にあり、聴覚、言語の理解、物や顔の認識などに関与します。内側には海馬などがあり、記憶にも重要です。言語機能の左右差には個人差があります。

5.1.5.1.5 島
島は、側頭葉をどけてみないと見えません。以下の図を見てください。
島皮質は、外側溝の奥にある大脳皮質です。前頭葉・頭頂葉・側頭葉の一部である「弁蓋」に覆われているため、脳を外側から見ただけでは分かりません。
島皮質は、内臓などからの情報を扱う内受容感覚、味覚、痛み、重要な刺激への注意などに関わります。身体の状態と感情や自己の感覚を結び付ける働きも研究されています.。「自己意識」形成に関わっている可能性があります。


5.1.5.2 大脳辺縁系
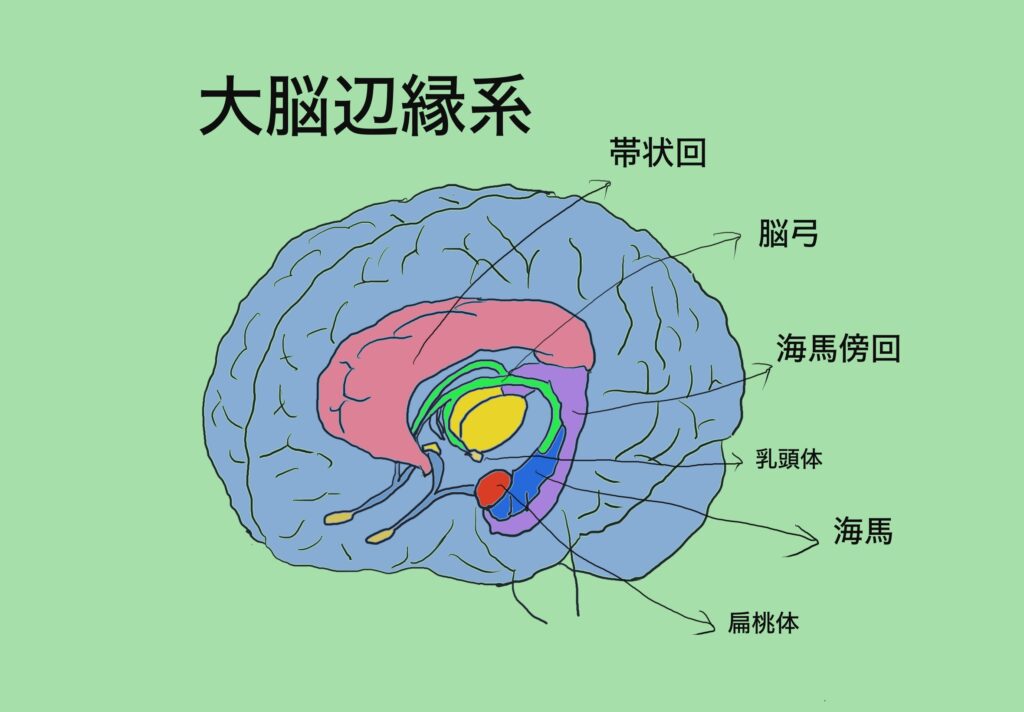
大脳辺縁系は、情動、記憶、動機づけ、自律神経の調節などに関わる複数の領域をまとめた呼び方です。どの領域まで含めるかは、文献や目的によって異なります。
深部の神経核だけでなく、海馬や帯状皮質などの皮質も含まれます。「辺縁系は本能の脳、大脳皮質は理性の脳」ときれいに分けることはできません。ここでは、関連する代表的な部位を紹介します。
5.1.5.2.1 海馬
Dr.ラクダ海馬は、記憶を定着させる機能があるようです。
海馬は、新しく経験した出来事や知識の記憶を形成し、定着させる働きに重要です。場所や出来事同士の関係を覚えることにも関わります。
「数秒間だけ数字を覚える」といった短期記憶やワーキングメモリー全般を、海馬だけが担うわけではありません。一方、情報同士の関係を保持するなど、課題によっては短い時間の記憶にも海馬が関わります。
アルツハイマー病では、海馬を含む内側側頭葉などが障害され、新しい出来事を覚えにくくなることがあります。食事をしたことを思い出せないこともありますが、症状や進み方には個人差があり、病気の影響は海馬だけに限られません。
5.1.5.2.2 扁桃体
Dr.ラクダ扁桃体は、快不快などを判断し、逃げるか、闘うかなどを判断します。ここが誤作動すると不安障害、恐怖症などになりやすいとされます。
入ってきた情報に対して「危険か、そうでないか」「快か不快か?(好きか嫌いか)」を瞬時に判断する部分です。山の中で、カサッと音がした時、逃げるか闘うかなど瞬時に判断し、体の各部位にそれに対応した指示を出す機能を果たすと言われています。生存にとって非常に大切な働きをします。不安障害などでは、ここが過敏になっていることが多いとされています(ここだけでは無いですが)。些細な刺激で不安、恐怖が感じられてしまって苦しむことになります。
5.1.5.2.3 帯状回
帯状回も大脳皮質の一部です。前方では注意、葛藤への対応、動機づけなど、後方では記憶や自分に関係する情報の処理などに関与します。領域ごとに働きが異なり、前頭前野や海馬などと連携します。
 シマウマくん
帯状回も最近、よく名前を聞きますね・・・。
5.1.5.2.4 視床下部
脳の底に位置する小さな部位ですが、生命維持の中枢を担っています。視床下部は、解剖学的には間脳に属し、視床の下方にあります。情動に関係する部位ともつながっているため、ここでも紹介します。
自律神経系に働きかけ、体の状態を一定に保つ「ホメオスタシス」の役割を担っています。摂食中枢、満腹中枢、血圧、心拍、飲水、体温、睡眠、ホルモンの調節などに関わっています。

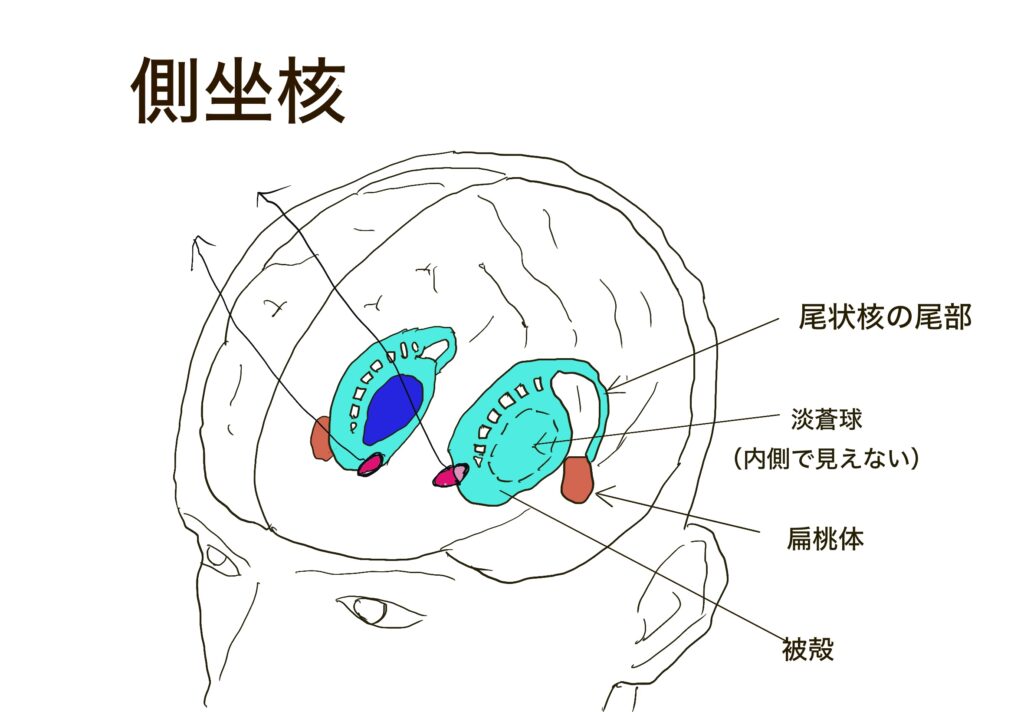
5.1.5.2.5 側坐核
Dr.ラクダ側坐核は、依存の話、統合失調症の話でよく出てくる部位です。
部位的には、次に述べる大脳基底核(腹側線条体)の一部にありますが、機能的には辺縁系と密接なつながりがあるために辺縁系として考えられることが多いようです。報酬を得ようとする動機づけや学習に関わります。腹側被蓋野から届くドーパミン信号などが、その働きを調節します。
ここがドーパミンで活性化するときには、「快」を感じ、その行動の頻度を増やそうとします(厳密に言うと、ドーパミン刺激は、行動を増やそうとする方向の刺激になり、「快」を感じるのは、側坐核のオピオイド受容体が刺激を受ける時が中心との研究があるようです。「快」と「モチベーション」が微妙に絡み合っているようです)。美味しいものを食べたら、活性化され、「また食べたい」となるわけです。カロリーが高い甘いものなど食べると「快」を感じ、さらに食べたくなることは、昔の時代は、生存に適応的だったと考えられます。食べ物が十分にある現代では、必ずしも適応的ではなく、肥満や糖尿病になりやすくなり、むしろ生存確率を下げる方向に行きかねません。現在、よく問題になる「依存症」にも絡んでくる部位です。 依存症に、この回路は関係しますが、依存症には他にも報酬、習慣、ストレス、行動の制御など複数のしくみと、生活環境などが関わっていて複雑です。
5.1.5.3 大脳基底核
これも脳の中心部、深くにある部位です。大きな領域でもあります。下図のように、そこだけ取り出して見ると、何かの貝の貝柱やヒモのようにも見えます。 青い部分です。

機能的な基底核の回路には、間脳の視床下核や、中脳の黒質なども含まれます。
名前の組み合わせが少しややこしいので、整理しておきます。
| 名称 | 主な構成 |
| 背側線条体 | 尾状核と被殻 |
| 腹側線条体 | 側坐核など |
| レンズ核 | 被殻と淡蒼球 |
尾状核、被殻、淡蒼球という3つの部位で構成されます。前の二つをまとめて線条体(肉眼で線が見えるからだそうです)、後の二つをまとめてレンズ核(レンズみたいな形だからだそうです)とも呼びます。ややこしいですね。そして線条体の前方(腹側)に上記の側坐核があります。
大脳基底核の機能は、まず「運動の調整」です。直接体を動かすのは大脳皮質の運動野ですが(もちろん、脳幹、脊髄の運動ニューロンも介します)、基底核で、スムーズに開始させたり、止めたり、滑らかな運動になるように調整しています。そして「行動の習慣化、自動化」に関わるとされます。タイピングが無意識にできるようになったり、考えずに自転車に乗れたりすることを司ります。「感情や動機づけへの関与」も注目されています。先述の側坐核の刺激は、やる気、意欲、快不快などに関係し、その行動を繰り返す方向に我々を動機づけます。それが過剰になることが依存症のメカニズムと言われています(ストレス、習慣など複数の系が関わります)。そして前記の「自動化」により、それほど欲しいわけでも無いのに、無意識にタバコを吸ってしまったりと、習慣化した嗜癖の機構に関与するとされています。
5.1.6 間脳とそれにつながる下垂体
間脳には、視床、視床下部、視床上部、視床下域などがあります。松果体は視床上部に属します。下垂体は視床下部とつながる内分泌器官で、下垂体全体を間脳の一部とするわけではありませんが、繋がりがあるために、ここでまとめます。

5.1.6.1 視床
視床と視床下部は名前も似ていて隣に位置しているけど機能は全く異なるので注意が必要です。視床は、全身の感覚神経からの入力(手の先が痛いとか、足の先が冷たいとか)が脊髄を通って登ってきます(下の図を参照。手足や体幹からの体性感覚は脊髄を通って上行しますが、顔の感覚、視覚、聴覚などは別の経路を通ります)。それが視床に入力し、ここでリレーして大脳皮質の感覚野に入力されます。大脳皮質で「痛い」と感じるわけです。嗅覚以外の全ての感覚が視床で中継されます。おそらく中継されながら、フィルターがかかっているのでしょう。
 ラッコくん
視床は、感覚刺激の中継地点だね・・・。


5.1.6.2 視床下部(5.1.5.2.4 視床下部 )
これは、前節で書いたので省略しますね。
5.1.6.3 下垂体
Dr.ラクダ下垂体もたくさんの機能を担っています。ホルモン調節をしています。ニューロンのように電気的で速い調節ではなく、血流にホルモンを流していくことによる調節です。
下垂体は、脳の底ぶら下がった位置にあり、視床下部と短い茎でつながっています。鼻の奥の方の上側にあります。だから下垂体腫瘍などの治療では、鼻から内視鏡等を入れて、腫瘍を摘出したりします。機能的にはホルモン活動の司令塔です。
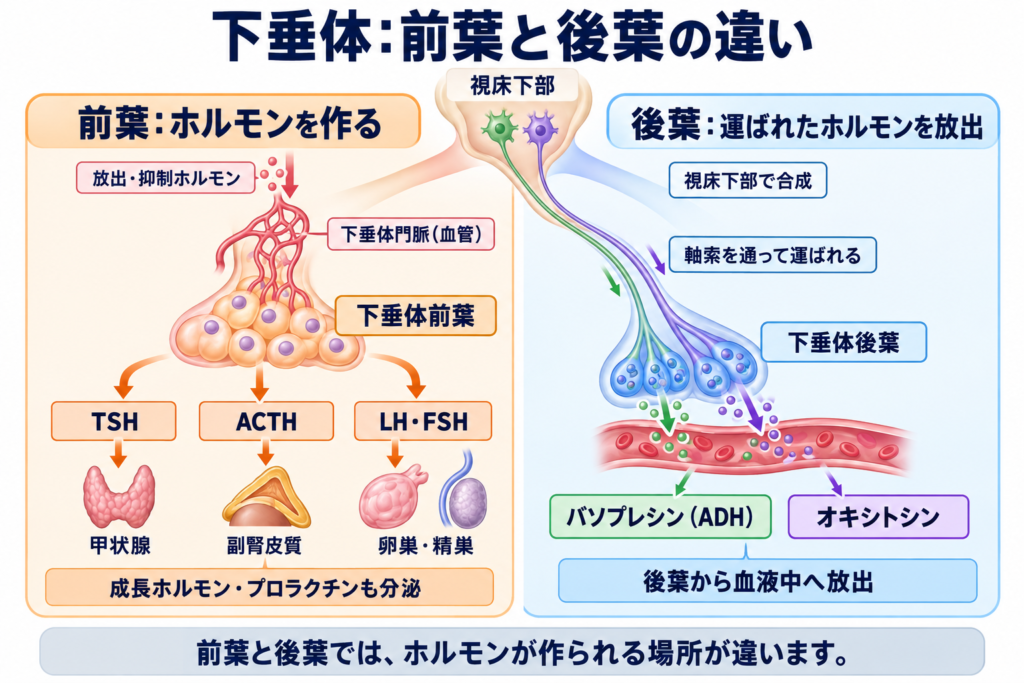
下垂体には前葉と後葉があり、ホルモンを作る場所が異なります。
前葉は、視床下部から下垂体門脈という血管を介して届く放出・抑制ホルモンの影響を受け、ホルモンを合成・分泌します。甲状腺を刺激するTSH、副腎皮質を刺激するACTH、卵巣や精巣に作用するLH・FSHなどがあります。成長ホルモンやプロラクチンも前葉から分泌されます。
前葉は血管を介して調節を受け、ホルモンを作って放出します。
 レッサーちゃん
下垂体には前葉と後葉があるのね。
後葉から放出されるバソプレシン(抗利尿ホルモン、ADH)とオキシトシンは、視床下部のニューロンで合成され、軸索を通って後葉に運ばれます。バソプレシンは主に体の水分保持に、オキシトシンは子宮収縮や乳汁の射出などに関わります。
シマウマくんオキシトシンは、自閉スペクトラム症の話でも聞きますね・・・。
視床下部で作られたホルモンが軸索を通り、後葉から放出されます。
このように、脳は神経だけでなくホルモンを通じても全身に働きかけています。
5.1.6.4 松果体
松果体は、下の図を見てください。背側にあります。中央に一つあって、松ぼっくりのようなのでこの名前がついたそうです。メラトニンというホルモンを産生しています。メラトニンは、光がなくなると産出されて、睡眠を誘発します。海外ではサプリで売られていたりします。昼間起きていて、夜になると眠くなるという、人間のサイクルに関係します。睡眠のところで、また触れると思います。
ラッコくんメラトニンは、睡眠の話でよく出てきますね。

5.1.7 小脳
小脳は、大脳の下側、背側にあります。下の図を見て下さい。運動のタイミングや力加減、姿勢や平衡の調節、動きの誤差から学ぶことなどに関与します。
障害されると、歩行がふらついたり、指を目標に向けたときに行き過ぎたり、届かなかったりすることがあります。小脳は運動だけでなく、認知や感情に関わるネットワークにも参加しています。
5.1.8 脳幹
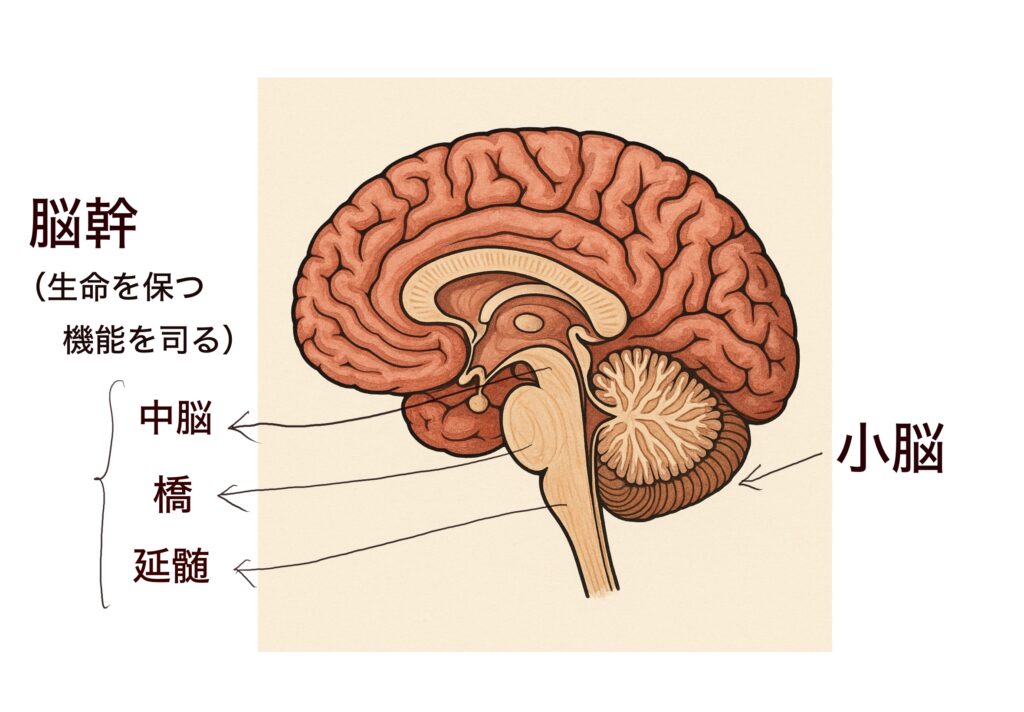
脳幹は、大脳(その中の特に間脳)と脊髄の間の部分です。生命を保つ機能を司る神経核が密集している部位です。中脳、橋(きょう)、延髄から成ります。感覚や運動の通り道であるとともに、多くの脳神経核があり、覚醒、呼吸、循環などの調節に関わっています。
5.1.8.1 中脳
下の図を見てください。精神医学的に重要なのは、中脳には黒質という部分と腹側被蓋野という部分があって、ここでドーパミンという物質が作られています。黒質(の中の緻密部と呼ばれる部位)にあるドーパミン神経は、基底核の線条体へ軸索を伸ばしています。ここのドーパミン産生細胞が脱落し、ドーパミンが不足するとパーキンソン病になります。最近、iPS細胞から作った製剤がパーキンソン病の治療薬に承認されましたね(条件付きですが)。ここを補う趣旨です。細胞は、黒質そのものに移植するのではなく、被殻に移植するようです。また腹側被蓋野(vntral tegmental area VTA とよく表記されます)でもドーパミンが作られていて、ここの神経は、基底核の側坐核に線維を出しています。依存症や、統合失調症の話に出てくる領域です。前頭前野にも線維を出しています。

5.1.8.2 橋
橋は、中脳と延髄の間で、膨らんだ部分です。小脳と向き合っています。顔面の感覚や運動、眼球運動などに関わる神経核があり、小脳との連絡にも重要です。呼吸や睡眠・覚醒の調節にも関与します。

5.1.8.3 延髄
延髄は、脳から脊髄へと移行する部分であり、自律神経の副交感神経を司る迷走神経の核があったり、舌の神経や唾液腺の神経の核などがあります。嚥下、咳などの反射にも関与します。

5.1.9 脊髄
脊髄は、脊椎(背骨)の中に入っている細長いものです。脊髄から髭のように脊髄神経が出ていて、体の隅々まで神経が走っています。脳からの指令が、脊髄を通過して、体の隅々まで届く、遠心性の経路と、体の隅々で受ける刺激が、脊髄を通過して脳に届く求心性の経路があります。下に求心性の図解です。視床の説明で使った図を再掲します。
逆に脳の命令が、脊髄を通って、脊髄神経に伝わり、筋肉に達して、体を動かしているイラストを下に載せます。

脊髄は情報を脳へ中継するだけでなく、反射などの処理にも関わっています。反射とは、脳を介さずに反応することです。
脊髄のイラストを以下に載せます。脳と同じように、細胞体が集まっている灰白質と、神経線維が走っている白質があります。背中側に感覚神経があり、体からの刺激を受けた神経線維から刺激を受け、脳の方に上る線維を出します。お腹がわに運動神経があり、脳から下ってきた神経線維から刺激を受け取り、筋肉へ刺激をリレーして、届けます。

5.1.10 自律神経系
自律神経系の説明をします。自律神経という言葉は、日常でもよく使われています。「自律」とは、主として私たちが意識的に指示しなくても働くという意味です。逆にいえば、心臓の拍動や胃腸の運動などを、手足のように意のままに動かすことはできません。
自律神経系は、主に交感神経系と副交感神経系に分けられます。危険が迫ったときや運動時などには交感神経系の活動が高まり、瞳孔が開き、心拍数や心臓の収縮力が増し、気管支が広がります。例えば、山中で熊に出会ったような状況です。
一方、安静時や食後には、副交感神経系が心拍数を下げ、唾液や消化液の分泌、胃腸の運動などを促進します。ただし、交感神経と副交感神経が完全に交互にオン・オフされるわけではありません。安静時にも両方が活動し、臓器ごとにそのバランスが調節されています。
大事なところですが、ややこしいので、少々面倒な説明になりますが、お付き合いください。心と体が相互に干渉している部分になりますので、非常に重要なところです。まず下の図を見てください。ごちゃごちゃしているのでざっと眺めたら、次の説明を読んでください。
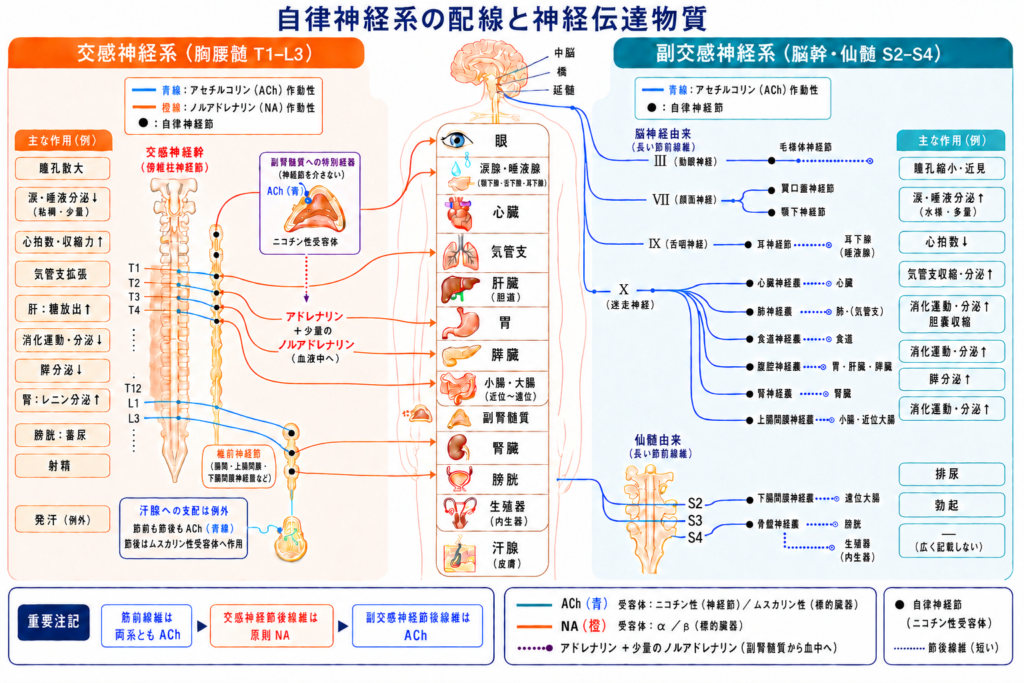
青線はアセチルコリン(ACh)作動性線維、橙線はノルアドレナリン(NA)作動性線維を示します。交感神経と副交感神経の節前線維は、どちらもAChを放出します。交感神経の節後線維は原則としてNA、副交感神経の節後線維はAChを放出します。ただし、汗腺(主に体温調節に関わるエクリン汗腺)を支配する交感神経の節後線維はAChを使用します。副腎髄質には交感神経節前線維が直接到達します。
上の図では、左側に交感神経系、右側に副交感神経系を示しています。また、青い線はアセチルコリン(ACh)を放出する線維、橙色の線はノルアドレナリン(NA)を放出する線維を表しています。
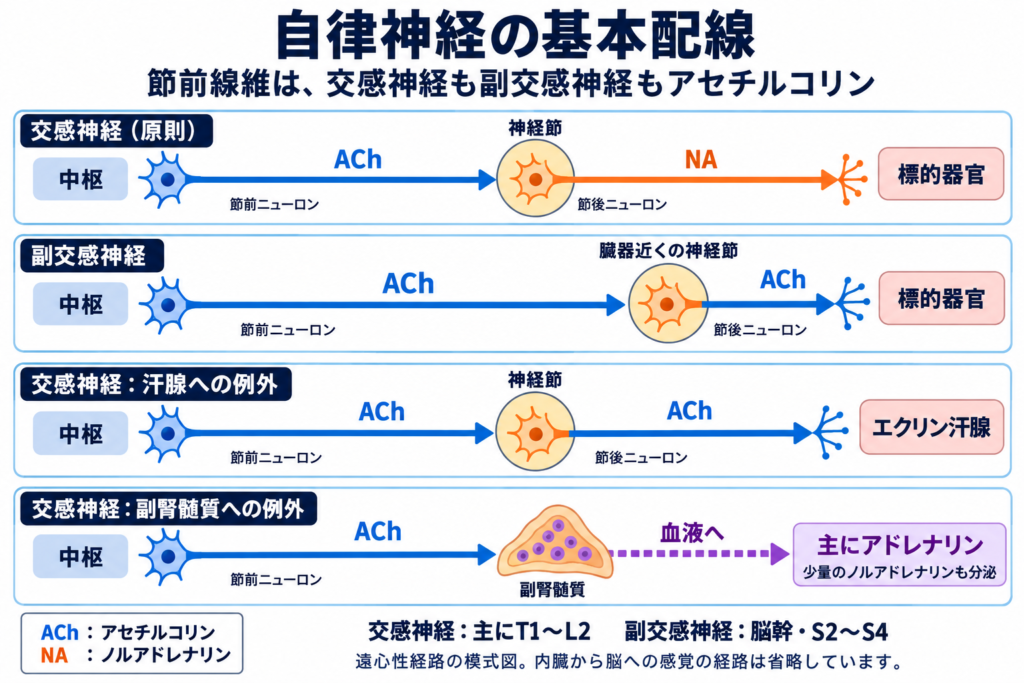
交感神経系
交感神経の節前ニューロンの細胞体は、胸髄から上部腰髄にかけての側角、おおむねT1〜L2にあります。
そこから出た短い節前線維は、脊柱の両側に縦に並ぶ交感神経幹の神経節や、腹部にある椎前神経節などで、節後ニューロンとシナプスを作ります。そこから比較的長い節後線維が、眼、心臓、気管支、血管、肝臓、消化管、膵臓、腎臓、膀胱、汗腺、生殖器などへ向かいます。
交感神経の節前線維は、アセチルコリンを放出します。一方、節後線維は原則としてノルアドレナリンを放出します。
ただし、汗腺(主に体温調節に関わるエクリン汗腺)を支配する交感神経の節後線維は例外で、アセチルコリンを放出します。交感神経でありながら、標的器官まで青い線になっていることに注目してください。
副腎髄質へ向かう経路も例外的です。交感神経の節前線維が、通常の節後ニューロンを介さず副腎髄質へ直接到達します。アセチルコリンの刺激を受けた副腎髄質は、主にアドレナリンと、少量のノルアドレナリンを血液中へ放出します。
副交感神経系
副交感神経系は脳幹と仙髄から出るため、「頭仙髄系」と呼ばれます。
脳幹からは、動眼神経(Ⅲ)、顔面神経(Ⅶ)、舌咽神経(Ⅸ)、迷走神経(Ⅹ)に、副交感神経の節前線維が含まれます。
動眼神経は瞳孔や眼のピント調節、顔面神経は、涙腺、顎下腺、舌下腺を支配。
舌咽神経は耳下腺の分泌に関与します。
最も広い範囲を支配するのが迷走神経です。迷走神経は心臓、気管支、胃、肝胆道系、膵臓、小腸、横行結腸の近位側までの消化管など、胸部と腹部の多くの臓器へ線維を送ります。横行結腸の近位3分の2まで支配し、その先は、骨盤内神経が支配します。「迷走」という名称は、広い範囲を巡るように走行することに由来します。
また腸管神経系が局所的にも長官の運動、分泌を調整もします。
仙髄のS2〜S4には、副交感神経の節前ニューロンがあります。そこから出る骨盤内臓神経は、遠位側の大腸、膀胱、生殖器などへ向かい、排便、排尿、勃起などに関与します。
副交感神経では、節前線維と節後線維の両方がアセチルコリンを放出します。副交感神経節は標的となる臓器の近く、または臓器の壁内にあるため、節前線維が長く、節後線維が短いことも特徴です。
脳と内臓の双方向の関係
脳幹や脊髄にある自律神経系のニューロン群は、間脳にある視床下部をはじめ、扁桃体、島皮質、帯状皮質、脳幹などから調節を受けています。
上の図は、脳や脊髄から臓器へ向かう遠心性の経路を中心に示しています。一方、内臓の状態を脳へ伝える内臓求心性線維も存在します。内臓求心性線維は自律神経の遠心路そのものではありませんが、自律神経と同じ神経の中を並走することがあります。
感情は自律神経を介して心臓、呼吸器、消化管などの働きに影響します。反対に、心拍、呼吸、胃腸などの状態を伝える内受容感覚も、私たちの身体感覚や感情に影響します。この双方向の関係は、心身相関を考えるうえで重要です。
5.2 神経系の発生
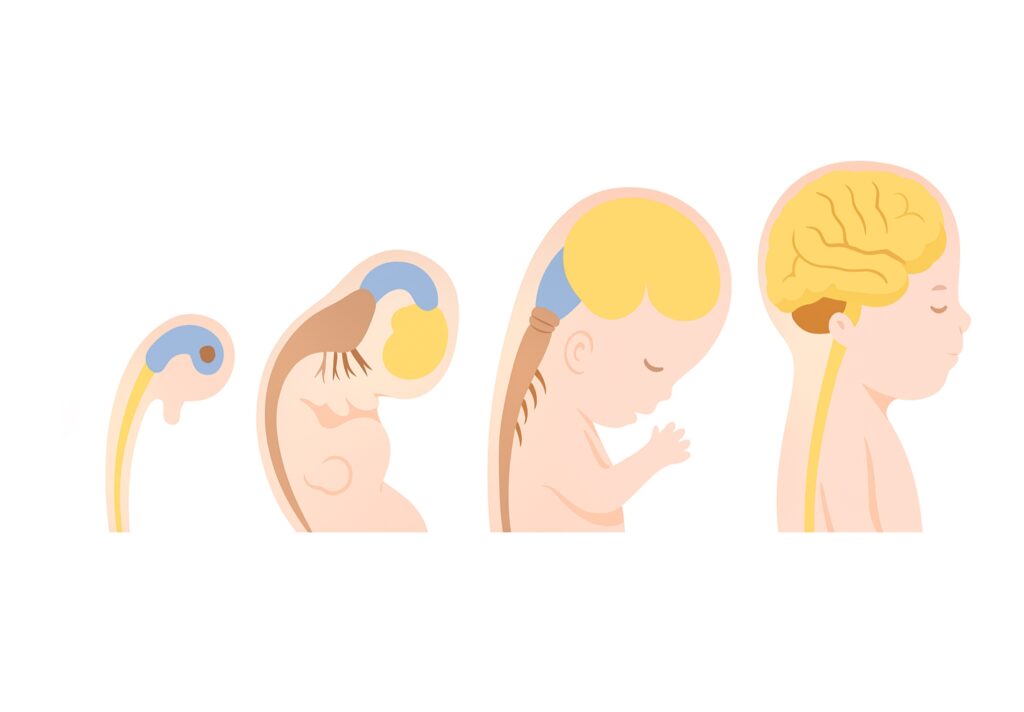
私たちの脳は、最初から今の形で存在していたわけではありません。出発点は、一つの受精卵です。そこから細胞が増え、役割が分かれ、必要な場所へ移動し、互いにつながって、神経系が形づくられます。
この流れを知ることは、感じ方や考え方の違い、そして精神疾患へのなりやすさを考える土台になります。まずは「細胞が増える」「役割が分かれる」「移動する」「つながる」という動きをイメージしてみてください。
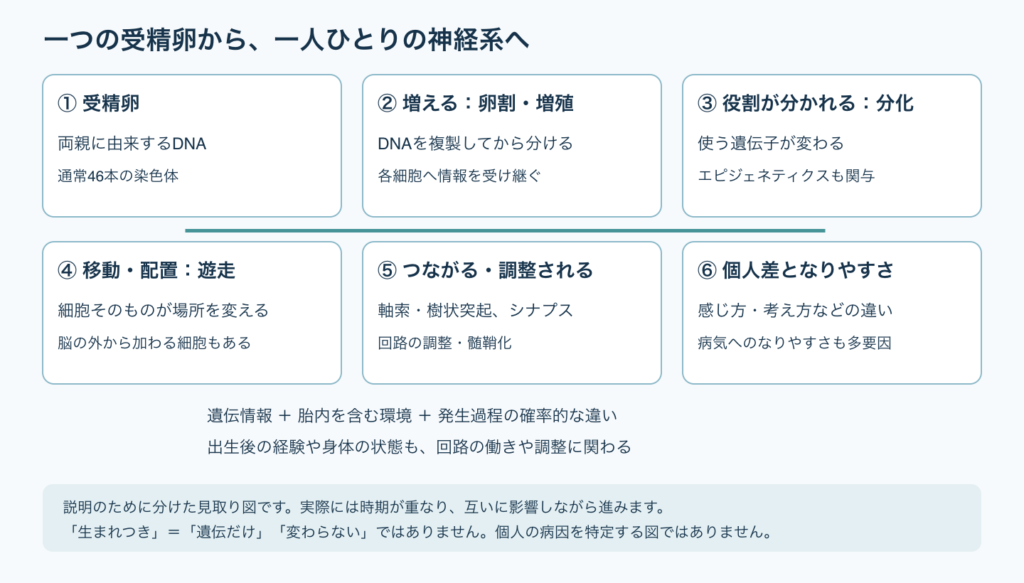
下の図は、まとめて色々と書いてあります。少しずつ説明していくのでざっと眺めて下さい。
5.2.1 一つの受精卵から、細胞が増える――卵割とDNAの複製
まとめ図の①、②、③の説明です。
通常、人の精子と卵子には、それぞれ23本の染色体があります。受精すると、両方に由来する染色体を持つ受精卵ができます。合わせて46本です。染色体には、体の材料や働きに関わる情報が、DNAとして収められています。
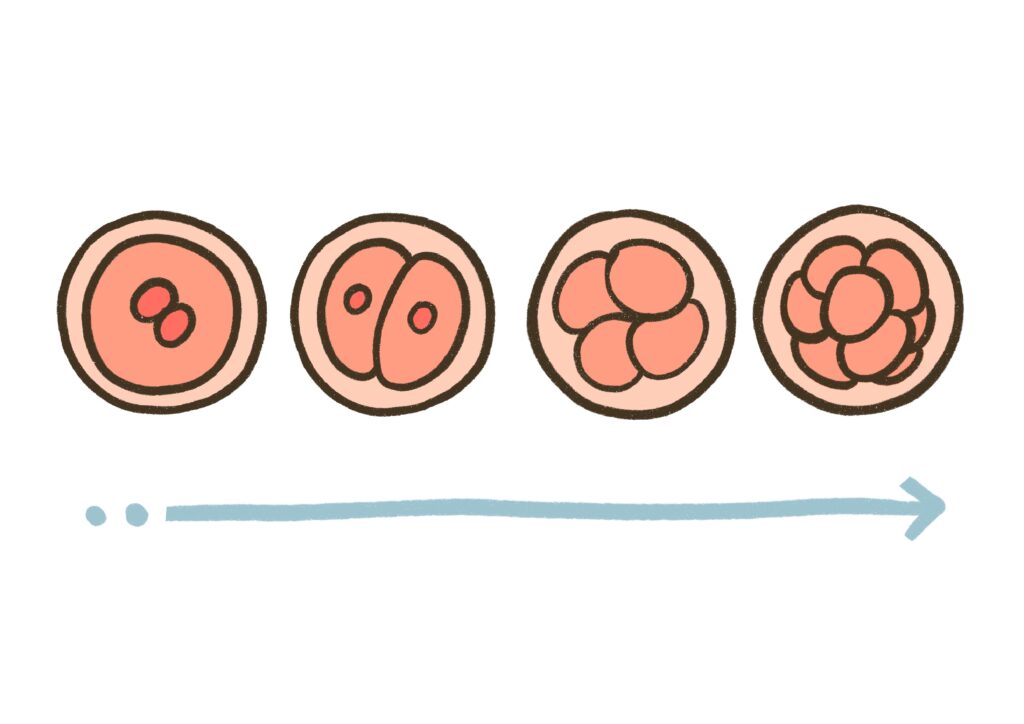
受精卵は、2個、4個、8個というように細胞分裂を進めます。初期のこの分裂を「卵割(らんかつ)」といいます。単に全体が大きくなるのではなく、初めは全体の大きさがあまり変わらないまま、より小さな細胞に分かれていきます。
細胞が分裂するときには、その前にDNAを複製し、二つの細胞へ分けます。情報を半分ずつ失っていくわけではありません。基本的には、それぞれの細胞が一式の遺伝情報を受け継ぎます。
ただし、コピーは常に完全というわけではなく、発生の途中にDNAの変化が生じることもあります。「同じ人の細胞は、基本的に同じ遺伝情報を共有している」と捉えておきましょう。
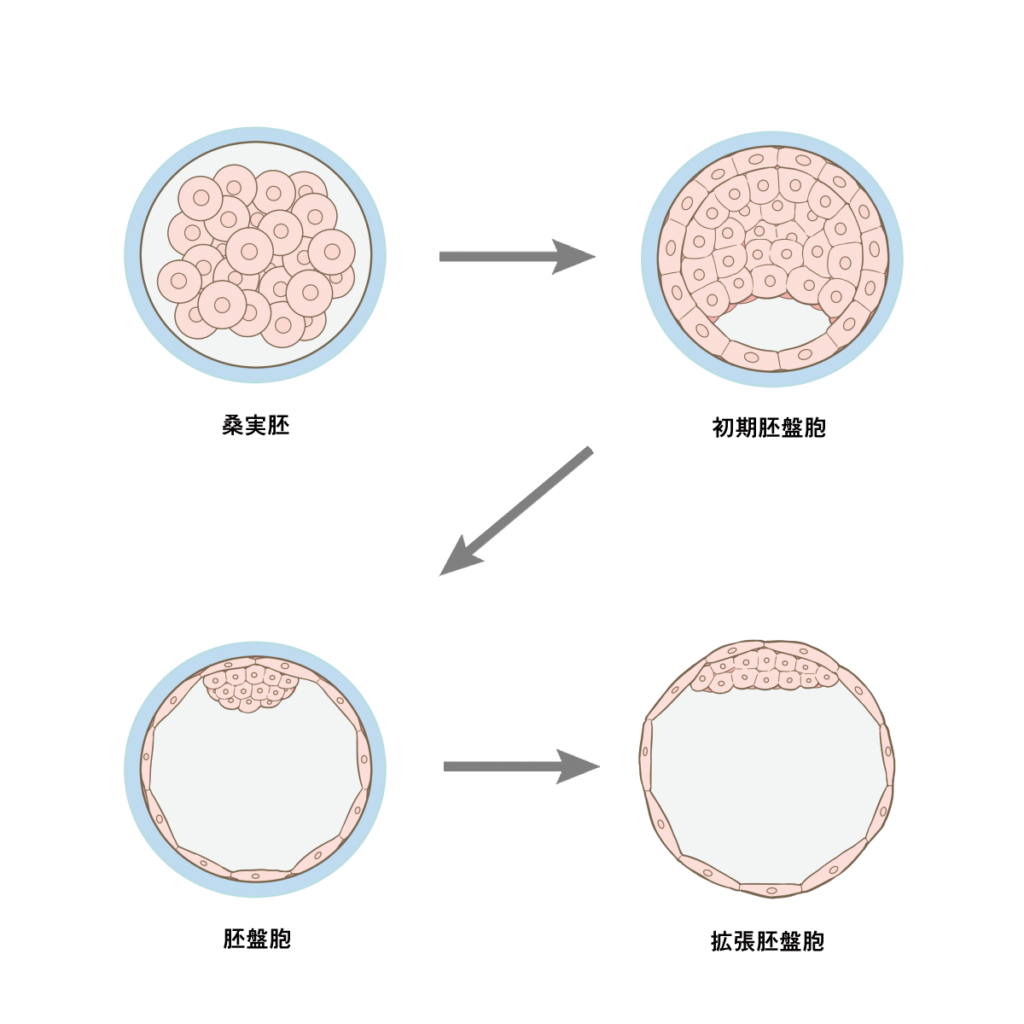
5.2.2 同じ情報を持つ細胞が、違う役割を担う――分化
基本的に同じ遺伝情報を持っているのに、なぜ皮膚の細胞とニューロンは、形も働きも違うのでしょうか。
大きな理由は、使っている遺伝子が違うからです。同じ本を持っていても、どのページを開いて使うかによって、作られるものが変わるようなイメージです。細胞は、周りから受ける信号や、その細胞の内部の状態に応じて、使う遺伝子を調節します。こうして性質や役割が専門化していくことを「分化」と呼びます。
この調節には、DNAのメチル化や、DNAを巻き付けるヒストンというタンパク質の修飾なども関わります。DNAの文字の並びそのものを変えずに、その情報の使われ方を調節する仕組みが「エピジェネティクス」です。細胞の分化した状態を保つことにも関わります。ただし、分化には転写因子や細胞同士の信号なども関わっており、エピジェネティクスだけで説明できるわけではありません。
ここでの大事な区別は、DNAの複製は「情報を受け継ぐこと」、分化は「情報の使い方が変わり、役割が分かれること」です。
5.2.3 神経系の土台ができる――三胚葉、神経板、神経管
発生が進むと、細胞は移動しながら配置を変え、体のもとになる外胚葉・中胚葉・内胚葉という三つの層を作ります。「分裂しているうちに自然に三層になる」というより、細胞が動き、互いに信号を交わしながら、体の配置を作っていくのです。
外胚葉からは、表皮や神経系の主要な細胞が生じます。ここで「皮膚」といった場合、皮膚全体ではなく、主に表面の「表皮」を指します。
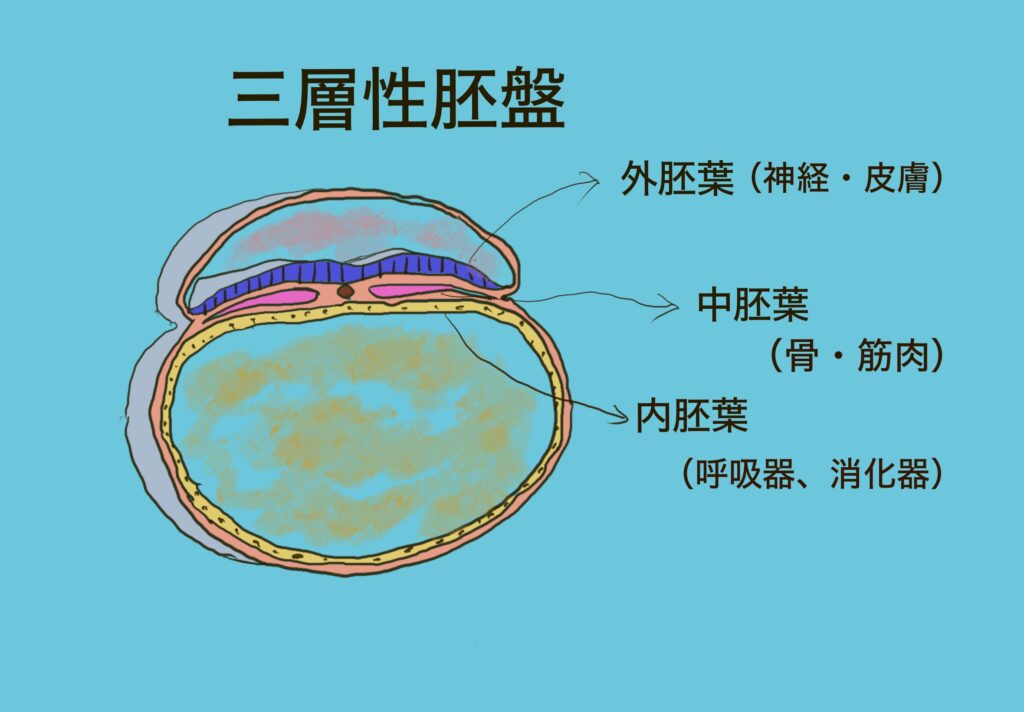
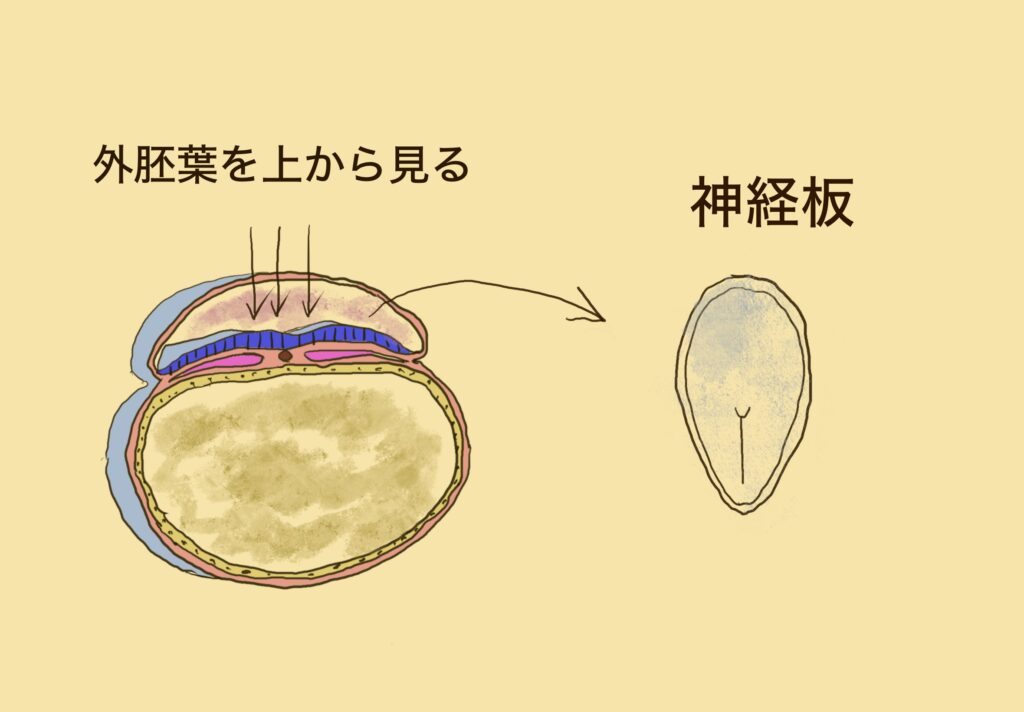
外胚葉の一部が、周囲の組織からの信号を受けて神経系になる方向へ進み、厚みを持った「神経板」になります。外胚葉の全体が神経板になるわけではありません。
神経板の中央がくぼむと「神経溝」になります。
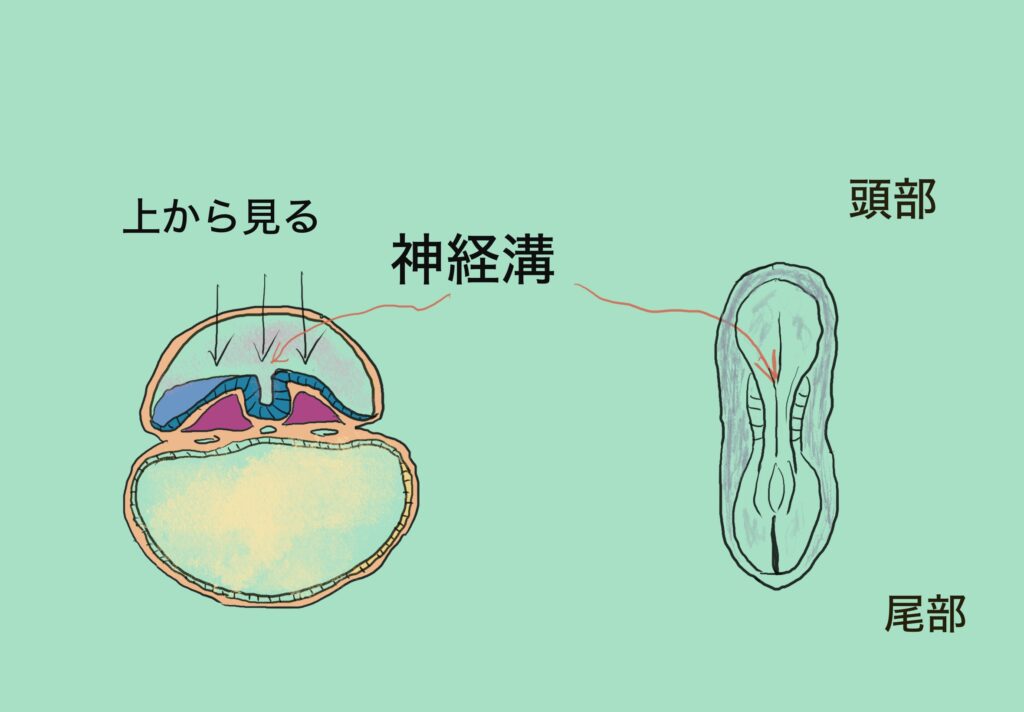
さらに両側の縁が近づいて閉じ、表面から離れると、内側が空洞の「神経管」になります。
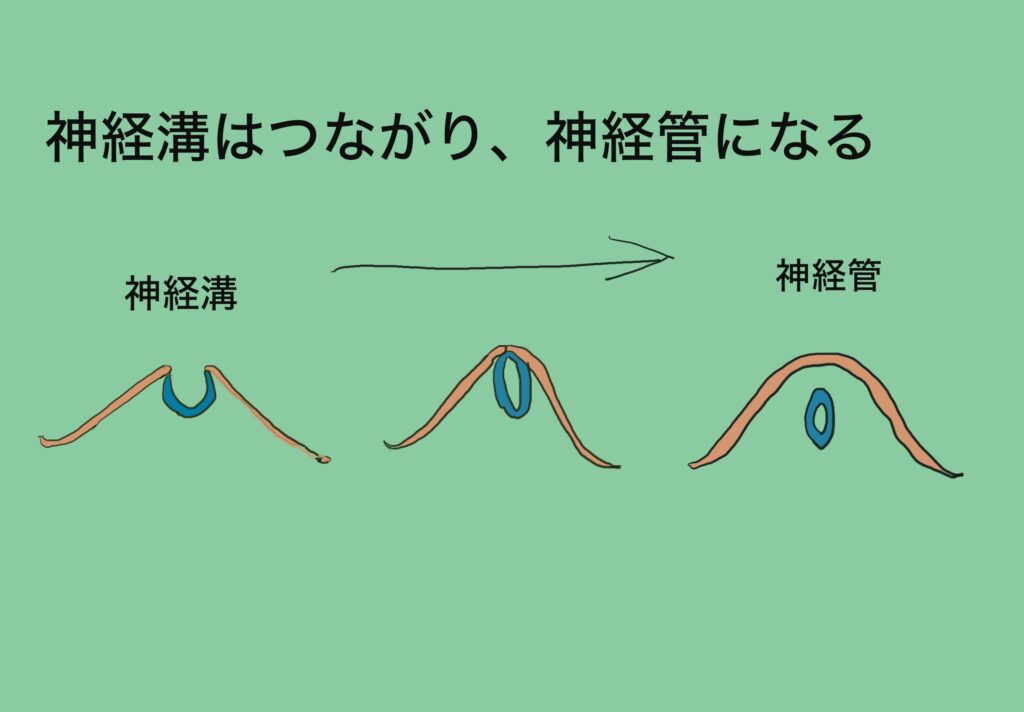
この神経管から脳と脊髄が形づくられます。
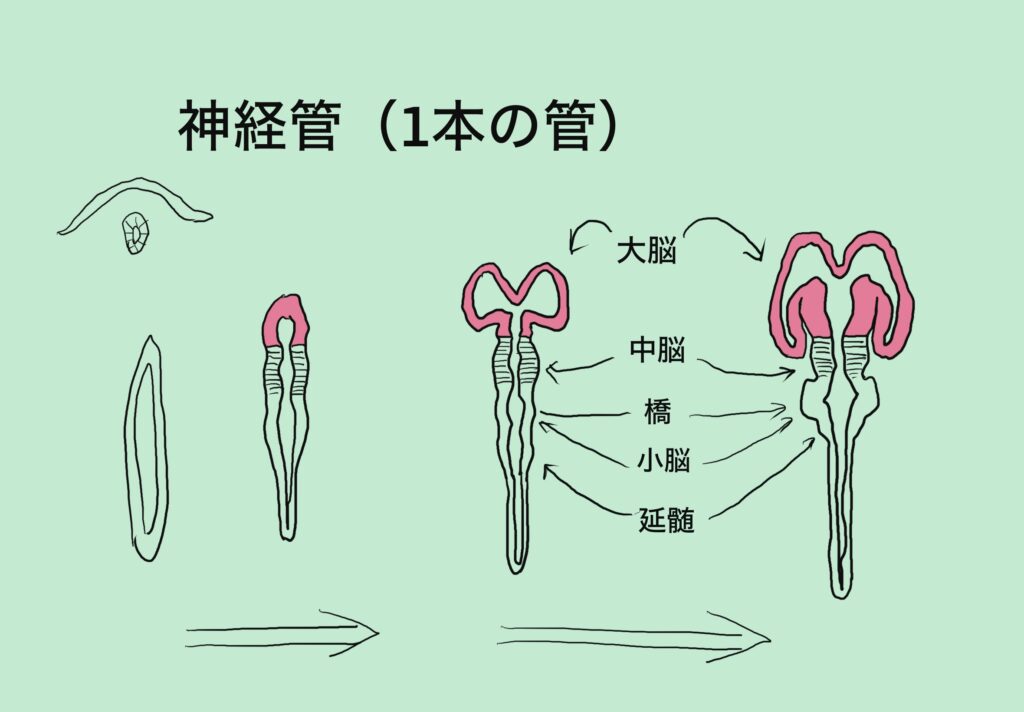
また、神経板と表皮になる領域との境界付近には「神経堤」という細胞群が生じます。これらは移動して、末梢神経系の多くのニューロンやシュワン細胞などになります。
5.2.4 細胞は、生まれた場所から動く――増殖と遊走
まとめ図を再掲します。④の説明です。
神経管ができても、神経系はまだ完成していません。神経幹細胞や前駆細胞が分裂して細胞を増やし、ニューロンや、アストロサイト・オリゴデンドロサイトなどのグリア細胞を生み出していきます。
分裂には、前駆細胞を増やすものもあれば、前駆細胞を残しながら、ニューロンになる細胞などを生み出すものもあります。成熟したニューロンの多くは、通常は分裂しません。「神経細胞がそのまま何度も分裂して脳全体を作る」と考えると、少し違ってしまいます。
そして、生まれた未熟なニューロンは、生まれた場所にそのまま留まるとは限りません。細胞そのものが移動して、働く場所へ向かいます。これを「遊走(ゆうそう)」と呼びます。
たとえば発生途中の大脳皮質では、脳室側で生まれた多くのニューロンが、脳の表面側へ移動します。その際、長く伸びた「放射状グリア」の突起を足場にする移動が見られます。放射状グリアは、移動の足場になるとともに、細胞を生み出す前駆細胞としても働きます。
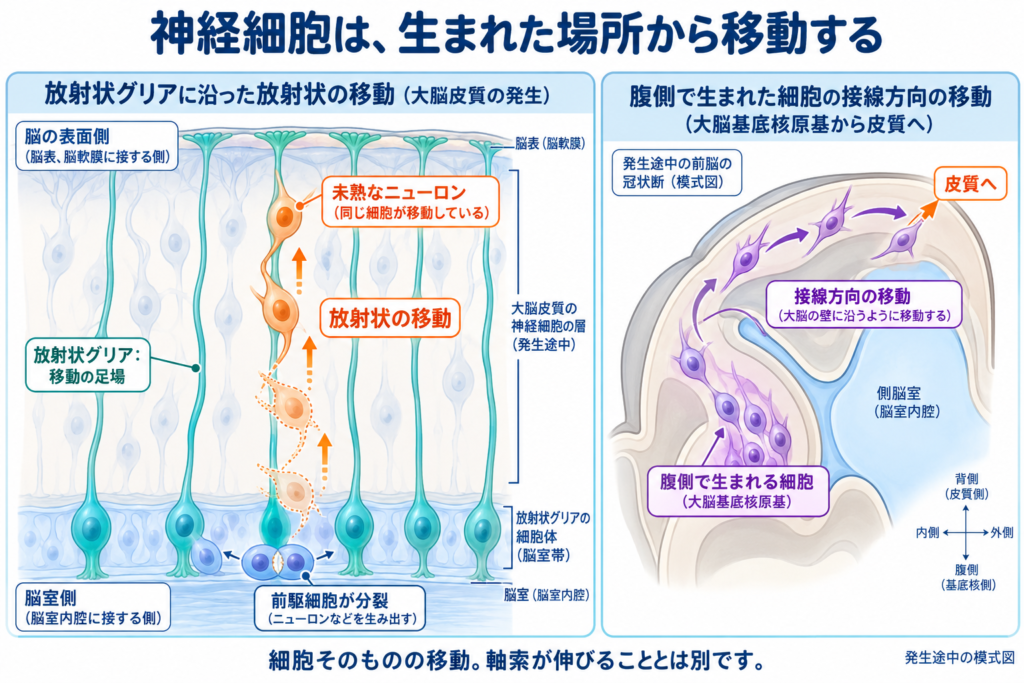
新皮質では、後から生まれたニューロンが先に生まれたものを追い越して、より表面に近い層へ配置されることが多くあります。一方、皮質の抑制性介在ニューロンの多くは、別の領域から横方向にも移動してきます。すべてのニューロンが、同じ場所から同じ道を通ってくるわけではありません。
つまり、脳を作るには、どんな細胞を何個作るかに加えて、いつ、どこに配置するかも大切なのです。
なお、遊走は「細胞の本体が場所を変えること」です。後で述べる「軸索を伸ばして、離れた細胞につながること」とは区別してください。
5.2.5 脳の外から加わる細胞もある――卵黄嚢とミクログリア
脳には、神経管から生まれる細胞だけが集まっているわけではありません。代表的な例が、ミクログリアです。
発生初期の胚のそばには「卵黄嚢(らんおうのう)」という、胚の外にある袋状の構造があります。人にもありますが、鳥の卵のように大量の卵黄をためている袋ではありません。初期の造血などに関わります。
ミクログリアは、中胚葉系に属する、卵黄嚢の造血部位で生じるマクロファージ系の前駆細胞に由来します。それらが血流などを介して発生途中の脳へ移住し、脳内でミクログリアになっていきます。この由来の細かな過程は、主にマウスなどの系譜追跡研究から明らかになってきました。動物の発生日をそのまま人の妊娠週数に置き換えることはできません。
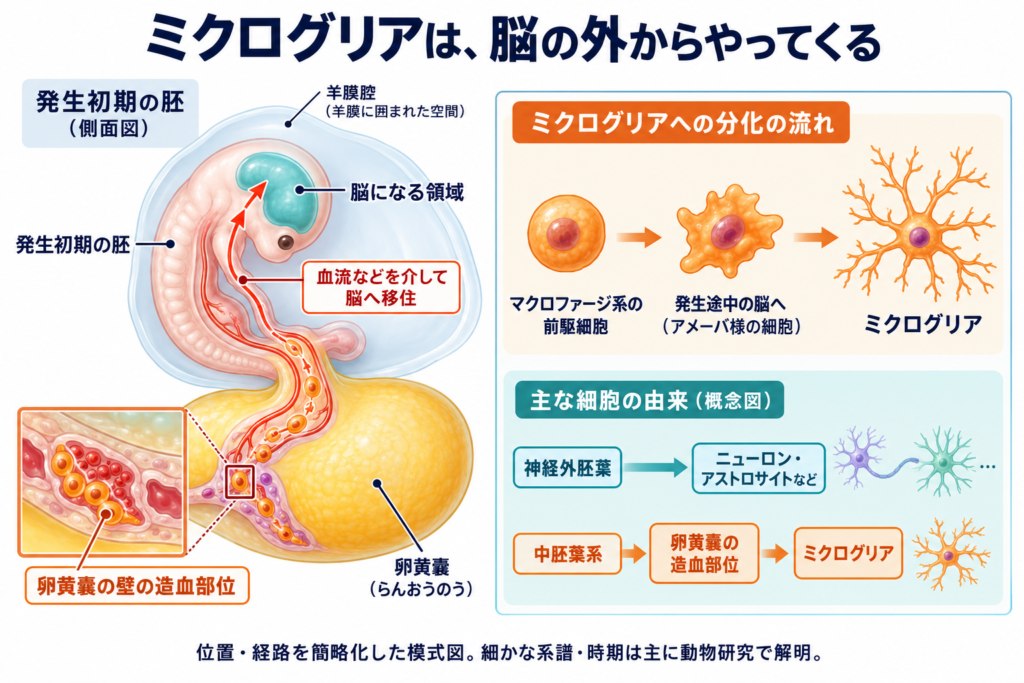
脳に定着したミクログリアは、通常、主に脳内で自己複製して維持されます。成人の血液中の単球が、いつも大量に補充されているというイメージとは異なります。
ミクログリアは、傷んだ細胞などを取り除くほか、発達中の神経回路の調整にも関わります。シナプスの一部を取り込んで回路を整える働きも、動物研究で示されています。ただし、回路の調整はミクログリアだけで行われるものではありません。
5.2.6 配置された細胞がつながる――神経回路の形成と調整
まとめ図です。⑤の説明です。
細胞が並ぶだけでは、情報を伝える神経系にはなりません。ニューロンは軸索や樹状突起を伸ばし、ほかの細胞とシナプスを作って、連絡できるようになります。軸索の先端は、周囲の分子の信号などを手掛かりに伸びていきます。
こうしてできたつながりも、そのまますべて残るわけではありません。神経活動や経験などに応じて、つながりの強さが変わり、一部は取り除かれます。これをシナプスの刈り込みと呼びます。「使った線は必ず残り、使わなかった線は必ず消える」という単純な選別ではありません。
また、オリゴデンドロサイトが軸索の周囲に髄鞘を作ることなどによって、情報の伝わり方も成熟していきます。回路の形成や調整は、出生後も続きます。
5.2.7 この積み重ねから、個人差となりやすさを考える
まとめ図の⑥の説明です。
ここまでを振り返ると、神経系は、受精卵に入っていた情報が、そのまま拡大コピーされて出来上がるものではありません。
細胞が増える。遺伝情報の使い方が変わって役割が分かれる。細胞が移動し、配置される。そして互いにつながり、そのつながりが調整される。この積み重ねによって、一人ひとりの神経系が形づくられます。実際には、これらは一段階ずつ完全に終わってから次に進むのではなく、時期や場所が重なりながら進みます。
その過程には、受け継いだ遺伝情報だけでなく、胎内を含む環境や、発生過程で生じる確率的な違いも関わります。生まれた後にも、経験や体の状態、周囲との関わりによって、脳の働きやつながりは変化します。
したがって、「生まれつき」は「すべて遺伝で決まった」という意味ではありません。また、「生まれつきの要因がある」ことは、「その後は変わらない」という意味でもありません。
こうした違いは、感覚の受け取り方、注意の向け方、感情の動き方などの個人差や、病気へのなりやすさを考える手掛かりになります。ただし、ある人の性格や精神疾患を、この説明だけから「遊走の違いが原因だ」「エピジェネティクスで決まった」と特定することはできません。多くの精神疾患には、遺伝的な違いと環境、生活上の経験など、複数の要因が関わります。
病気や苦痛を、その人の個性の一言で片付けることもできません。ここで理解しておきたいのは、一人ひとりの特徴や病気へのなりやすさには、神経系が作られ、その後も変化していく歴史が関わっているということです。その理解を土台に、治療や支援を考えていきましょう。
5.3 神経細胞と電気活動
5.3.1 細胞膜
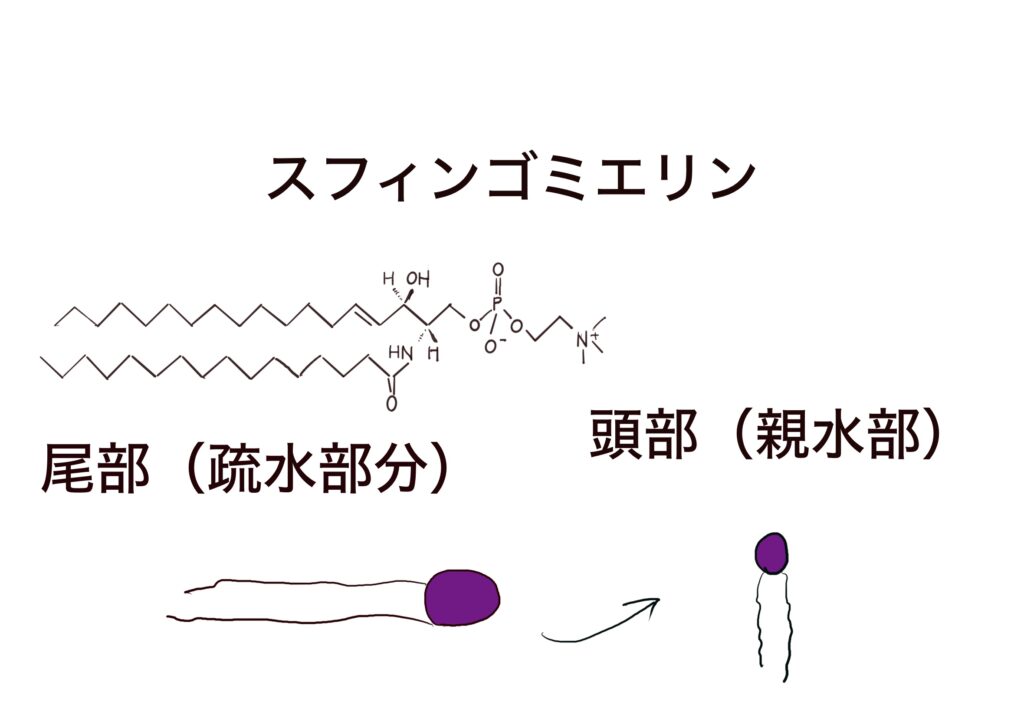
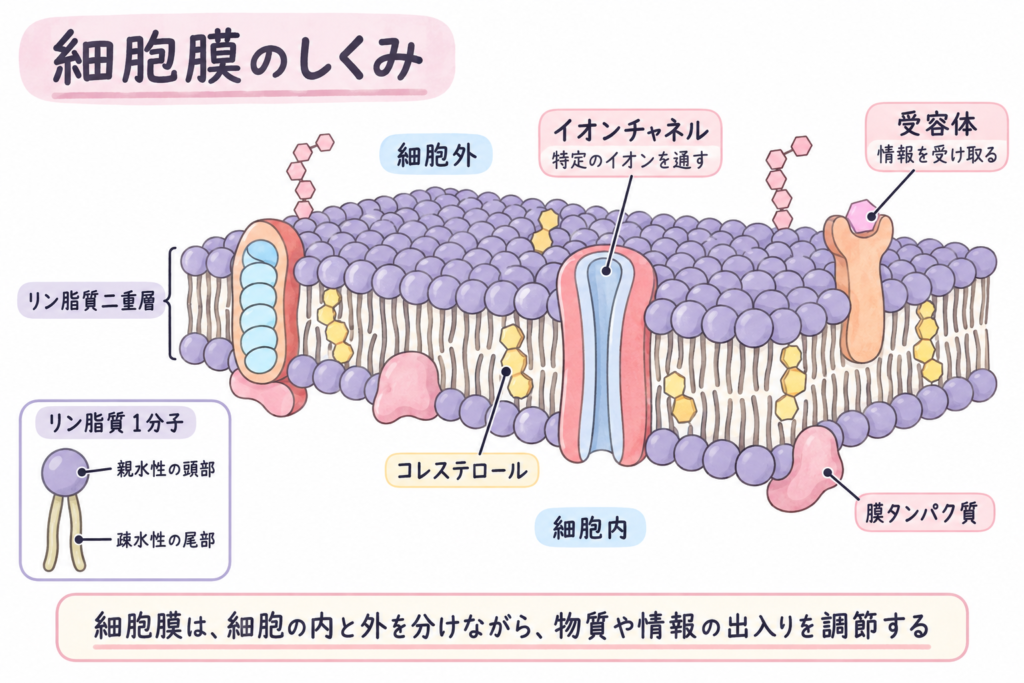
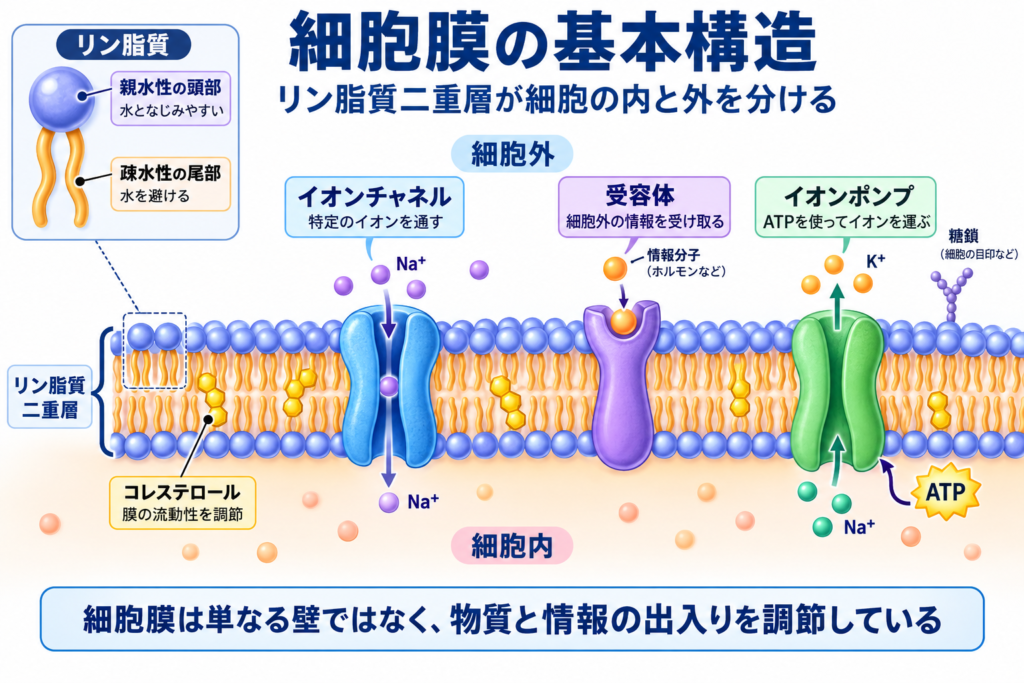
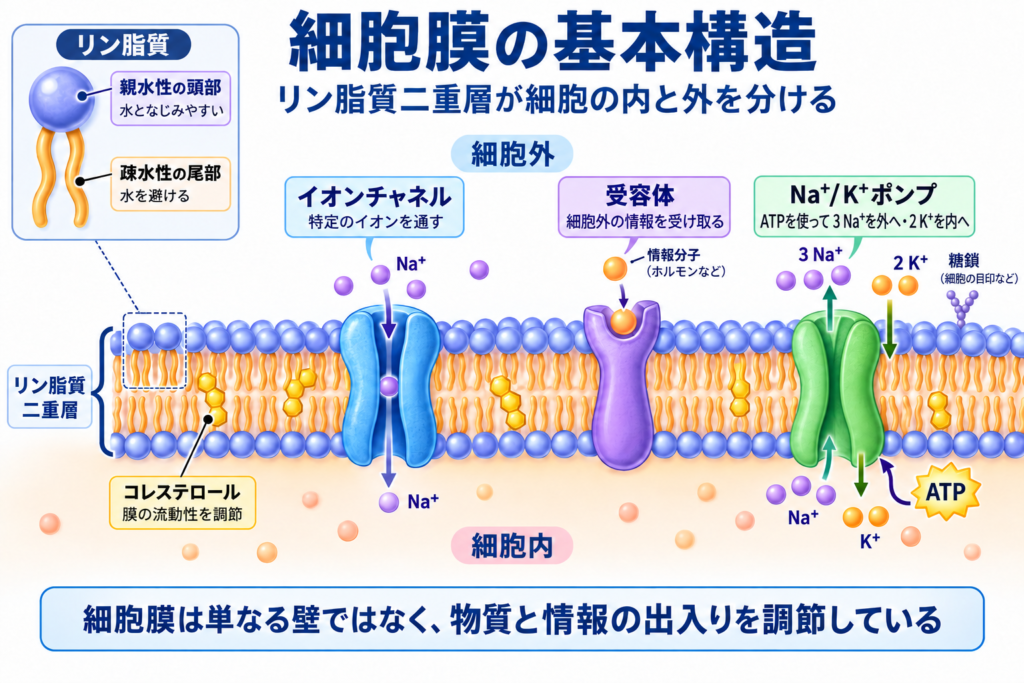
電気活動を説明する前に、まず細胞膜を見てみましょう。細胞膜は、主にリン脂質が二重に並んだ「リン脂質二重層」からできています。リン脂質には、水となじみやすい親水性の頭部と、水を避ける疎水性の尾部があります。親水性の頭部は細胞外液と細胞内液の側を向き、疎水性の尾部は膜の内側で向かい合います。こうして、細胞の内側と外側を隔てる膜ができます。膜には、受容体、イオンチャネル、イオンポンプなどのタンパク質も組み込まれています。
下の図を見てください。リン脂質の一種のスフィンゴミエリンの構造式と、その頭部(親水部)と尾部(疎水部)の図示です。
5.3.2 イオンポンプとイオンチャンネル
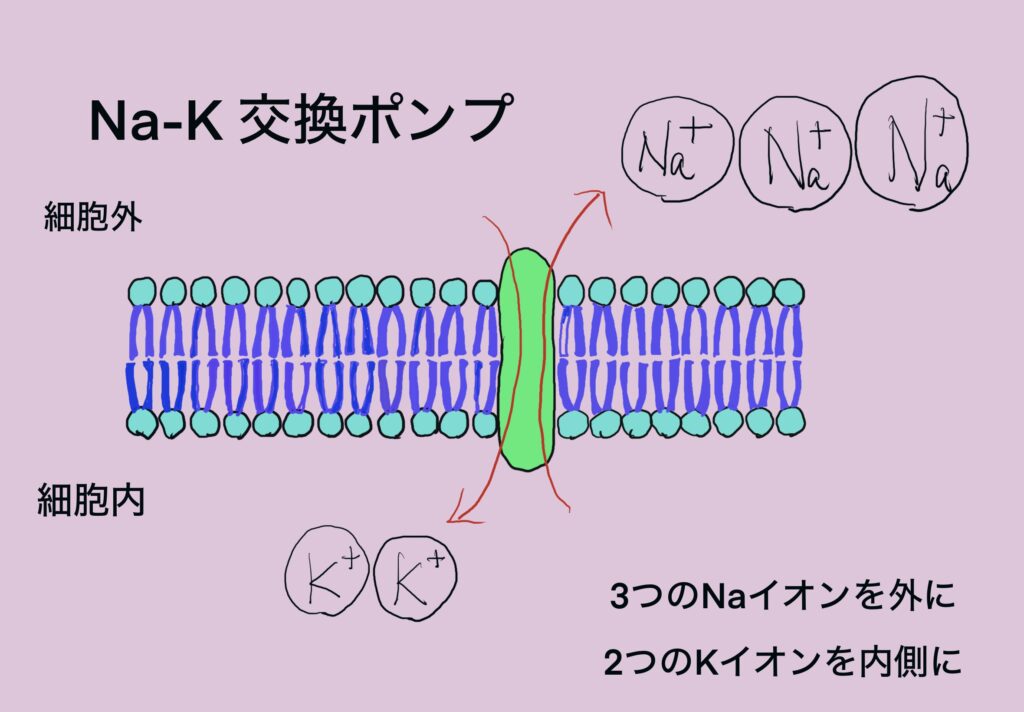
細胞の内外には、Na⁺、K⁺、Cl⁻など、電気を帯びたイオンがあります。細胞外にはNa⁺が多く、細胞内にはK⁺が多く存在します。Na⁺/K⁺ポンプはATPのエネルギーを使い、Na⁺を3個外へ、K⁺を2個内へ運ぶことで、この濃度差を維持しています。
5.3.3 静止膜電位
刺激を受けていないニューロンでは、細胞内は細胞外に対して電気的に陰性で、多くの場合およそ−60~−70 mVです。これを静止膜電位といいます。静止膜電位には、細胞膜がK⁺を比較的通しやすいことや、細胞内外のイオン濃度の違いなどが関係しています。
5.3.4 活動電位
刺激によって膜電位が一定の値(閾値)に達すると、電位依存性Na⁺チャネルが開き、Na⁺が細胞内へ流入します。その結果、膜電位が急速に上昇し、活動電位が生じます。一つの神経細胞で生じる活動電位は、閾値に達すればほぼ一定の大きさで発生し、達しなければ発生しません。これを「全か無かの法則」といいます。刺激が強くなっても、一つひとつの活動電位が大きくなるのではなく、主に活動電位が発生する回数が増えます。
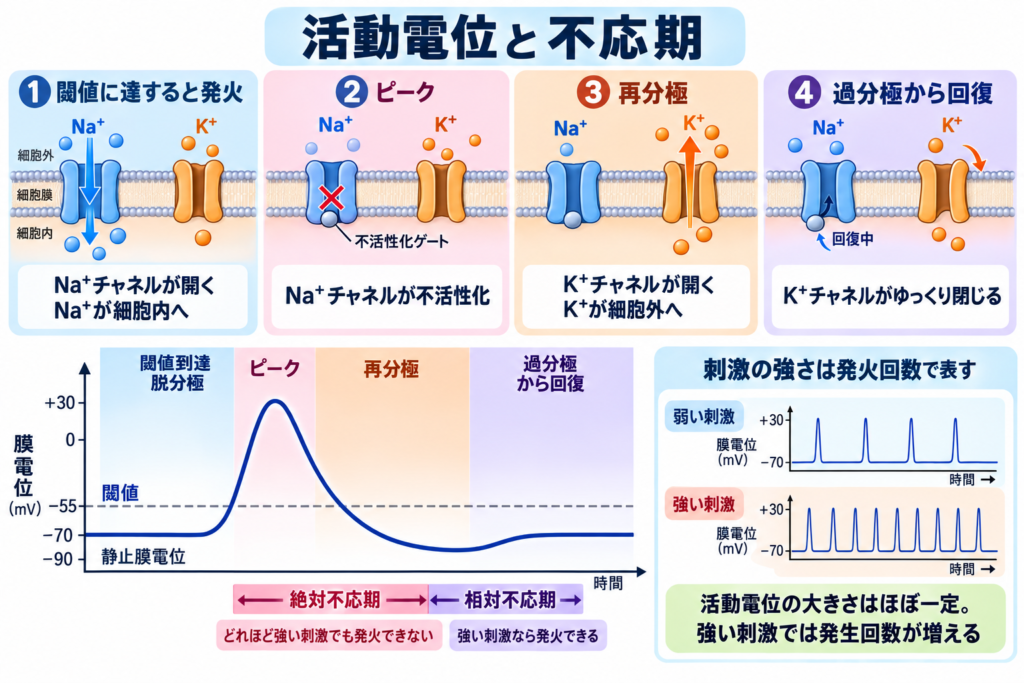
続いてNa⁺チャネルが不活性化し、電位依存性K⁺チャネルが開きます。K⁺が細胞外へ流出することで、膜電位は静止膜電位の方向へ戻ります。これを「再分極」といいます。K⁺チャネルは少し遅れて閉じるため、膜電位が一時的に静止膜電位よりも陰性になることがあります。これを「過分極」といいます。
活動電位の直後には、Na⁺チャネルが不活性化しているため、どれほど強い刺激を受けても次の活動電位を起こせない「絶対不応期」があります。その後、Na⁺チャネルの一部は回復しますが、K⁺チャネルの一部がまだ開いているため、通常より強い刺激でなければ活動電位を起こせない「相対不応期」が続きます。
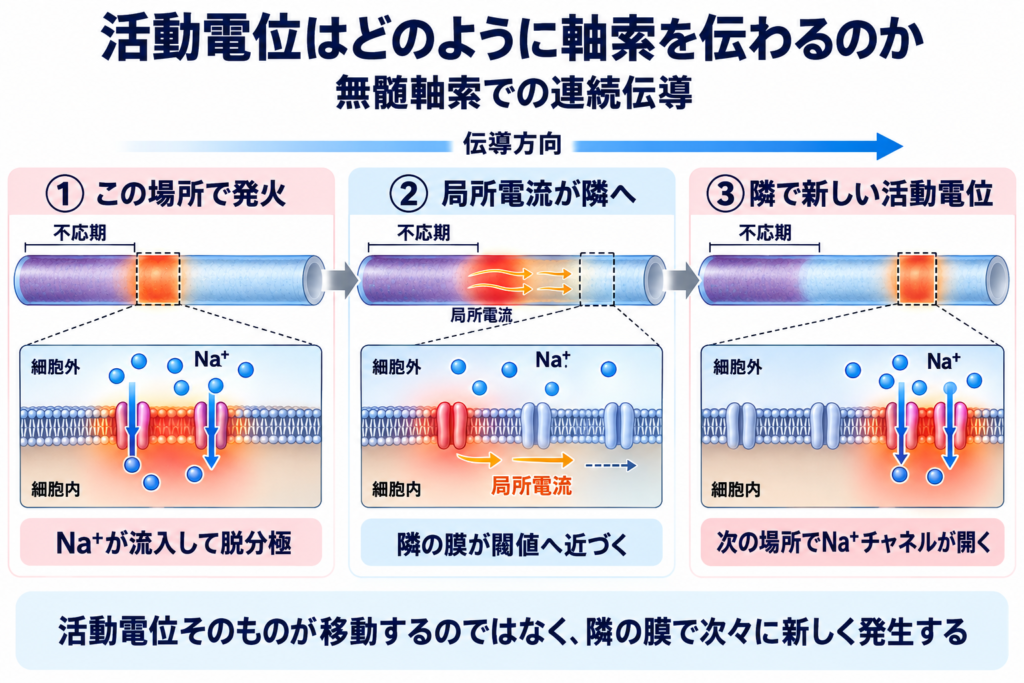
ある場所で生じた活動電位は、隣の軸索膜を刺激して、そこで新しい活動電位を生じさせます。この反応が次々に繰り返され、電気信号が軸索の先端へ伝わります。
軸索がミエリン鞘で覆われている場合、活動電位は主にランビエ絞輪で発生し、次の絞輪へ飛び移るように伝わります。これを跳躍伝導といい、信号を速く、効率よく伝えることができます。
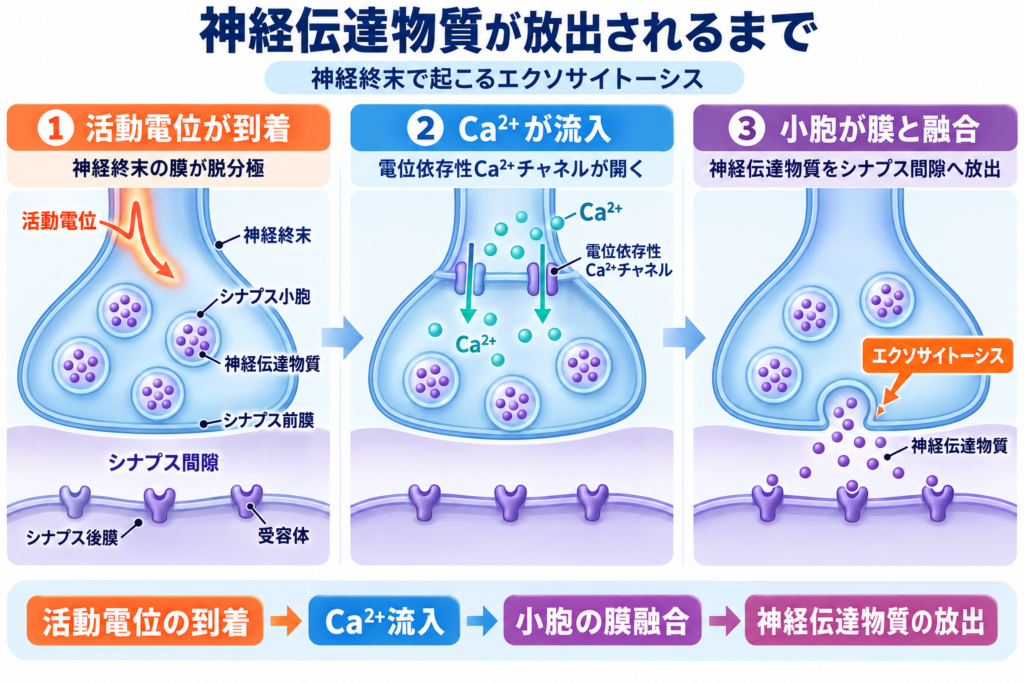
活動電位が神経終末へ到達すると、電位依存性Ca²⁺チャネルが開きます。流入したCa²⁺を合図にシナプス小胞が細胞膜と融合し、神経伝達物質がシナプス間隙へ放出されます。放出された伝達物質は、再取り込み、酵素による分解、拡散などによって取り除かれます。
5.4 神経伝達物質
活動電位が軸索の末端に到達すると、電位依存性Ca²⁺チャネルが開き、Ca²⁺が神経終末の中へ流入します。これを合図として、神経伝達物質を包んだシナプス小胞がシナプス前膜と融合し、神経伝達物質を細胞外へ放出します。この仕組みを「エクソサイトーシス」と呼びます。(上のイラストを見てください)
放出された神経伝達物質は、細胞と細胞の間にあるごく狭い「シナプス間隙」を拡散し、次の細胞の膜にある受容体と結合します。すると、イオンチャネルが開いたり、細胞内の情報伝達系が動いたりして、次の神経細胞の活動が変化します。
神経伝達物質には、グルタミン酸、GABA、ドーパミン、ノルアドレナリン、セロトニン、アセチルコリン、ヒスタミンなどがあります。これらは最初から完成した状態で体内に入ってくるのではなく、多くはアミノ酸などを原料として、酵素の働きによって段階的に作られます。小分子の神経伝達物質は、主に神経終末で合成され、小胞内へ取り込まれます。
なお、ニューロンは主に特定の神経伝達物質を使用します(ドーパミン作動性ニューロン、セロトニン作動性ニューロン・・・などと呼びます)。しかし一つのニューロンが複数の伝達物質を一緒に放出することもあるようです。
神経伝達物質は、大きく分けて3つに分類できます。アミノ酸(グルタミン酸、GABA、グリシンなど)、アミン(ドーパミン、ノルアドレナリン、セロトニン、ヒスタミンなど)、ペプチド(サブスタンスPなど)です。例外にアセチルコリンがあります(例外と言っても非常に重要な伝達物質です)。代表的なものを一つ一つ見ていきましょう。
5.4.1 グルタミン酸
グルタミン酸は、成熟した脳で最も主要な興奮性神経伝達物質です。一般に、次の神経細胞を発火する方向に向かわせます。 グルタミン酸神経は、広く脳に存在している。
合成経路は次のように表せます。
L-グルタミン(C₅H₁₀N₂O₃)
↓ グルタミナーゼ
L-グルタミン酸(C₅H₉NO₄)
↓ グルタミン酸脱炭酸酵素(GAD、ビタミンB₆を利用)
GABA(C₄H₉NO₂)
下のイラストを参照ください。
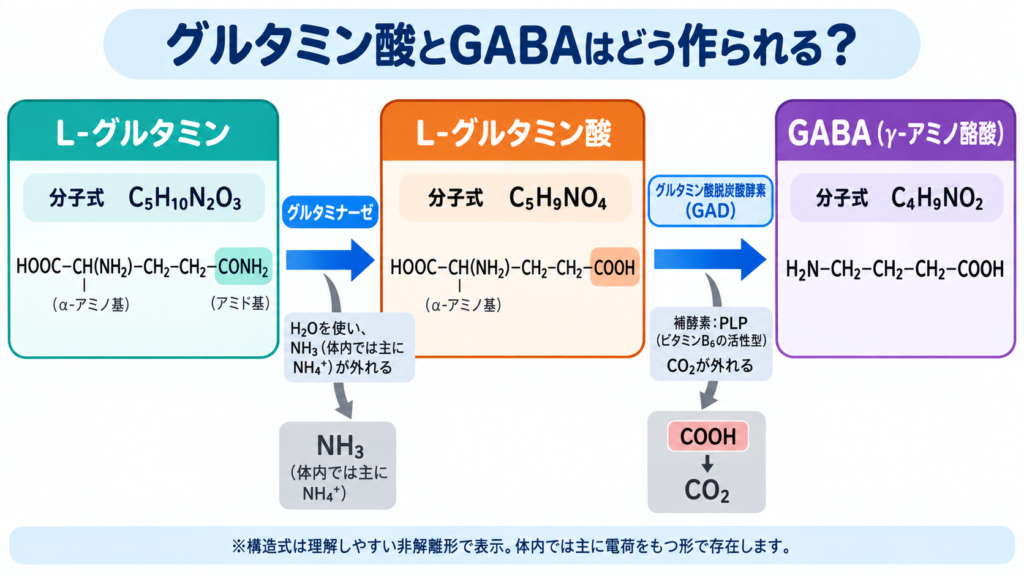
放出されたグルタミン酸の一部は、周囲のアストロサイトに取り込まれてグルタミンへ変換され、再びニューロンへ渡されます。 グルタミン酸は、次の神経を興奮させます。いつまでも作用すると過剰に興奮し、痙攣などを起こす方向に行きかねません。不活性化し、再利用を考えないといけません。
5.4.2 GABA
GABAは主要な抑制性神経伝達物質で、次の神経細胞を発火しにくくします。GABA神経も広く脳に存在します。先ほどの合成のイラストを参照ください。一つの化学変化でグルタミン酸(興奮)からGABA(抑制)に移行しています。似た物質ですが、真逆の作用をすることとなります。生体が、同じような物質を少し変化させて、真逆の方向に利用していることになります。 GABAの過剰は、鎮静、昏睡の方向に進みます。グルタミン酸の興奮とのバランスが大切です。
5.4.3 ドーパミン
ドーパミンとノルアドレナリンは、どちらもチロシンというアミノ酸から作られます。共通してカテコールという構造を持つため、「カテコールアミン」と呼ばれます。 チロシンは、食事のタンパク質を食べることで体内に摂取できます。
L-チロシン(C₉H₁₁NO₃)
↓ チロシン水酸化酵素
L-DOPA(C₉H₁₁NO₄)
↓ 芳香族L-アミノ酸脱炭酸酵素
ドーパミン(C₈H₁₁NO₂)
↓ ドーパミンβ水酸化酵素
ノルアドレナリン(C₈H₁₁NO₃)
さらに副腎髄質などでは、
ノルアドレナリン
↓ PNMT
アドレナリン(C₉H₁₃NO₃)
へ変換されます。 少しずつ変化していきますが、どれも有名な物質ですね。 L-ドーパは、パーキンソン病治療薬です。ドーパミンもよく名前が最近出ますよね。
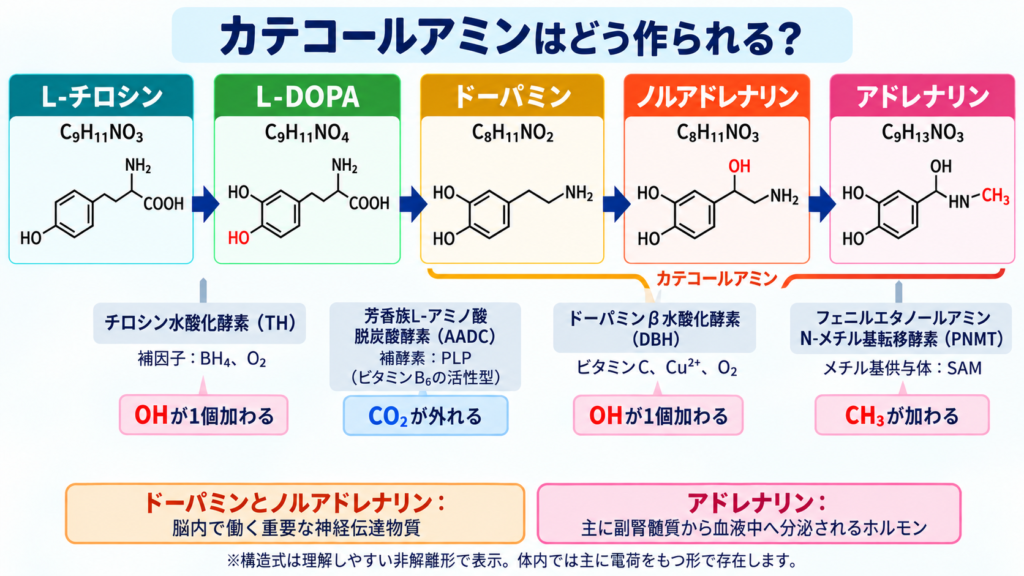
この経路では、チロシン水酸化酵素による最初の反応が、全体の速さを調節する重要な段階です。ドーパミンはノルアドレナリンの原料であると同時に、それ自体が独立した神経伝達物質です。
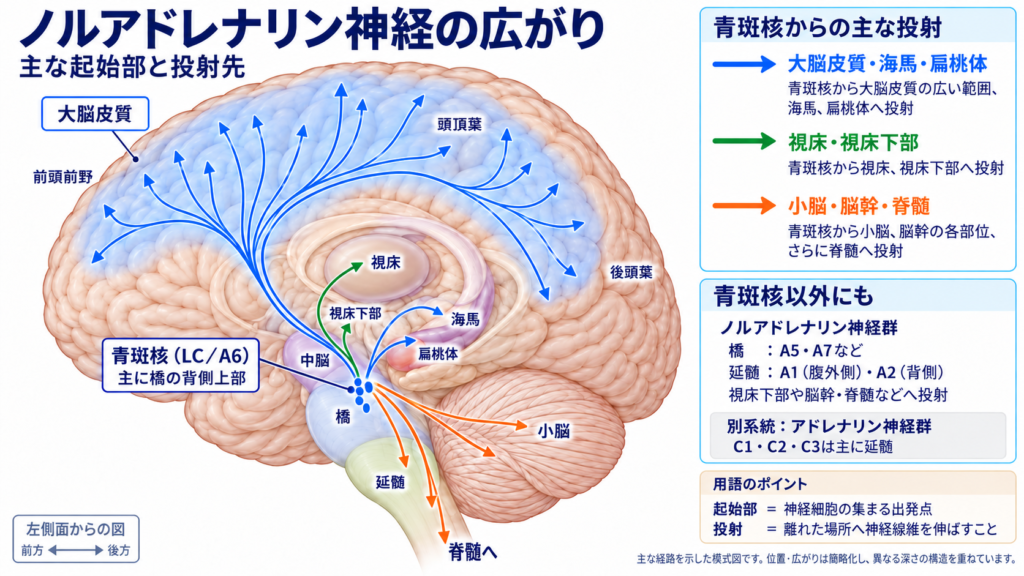
脳内では、ドーパミンを作るニューロンの細胞体は主に中脳に、ノルアドレナリンを作るニューロンの細胞体は主に橋の青斑核にあります。そこから伸びる軸索は脳の広い領域へ投射し、運動、注意、覚醒、学習、動機づけなどを調節します。
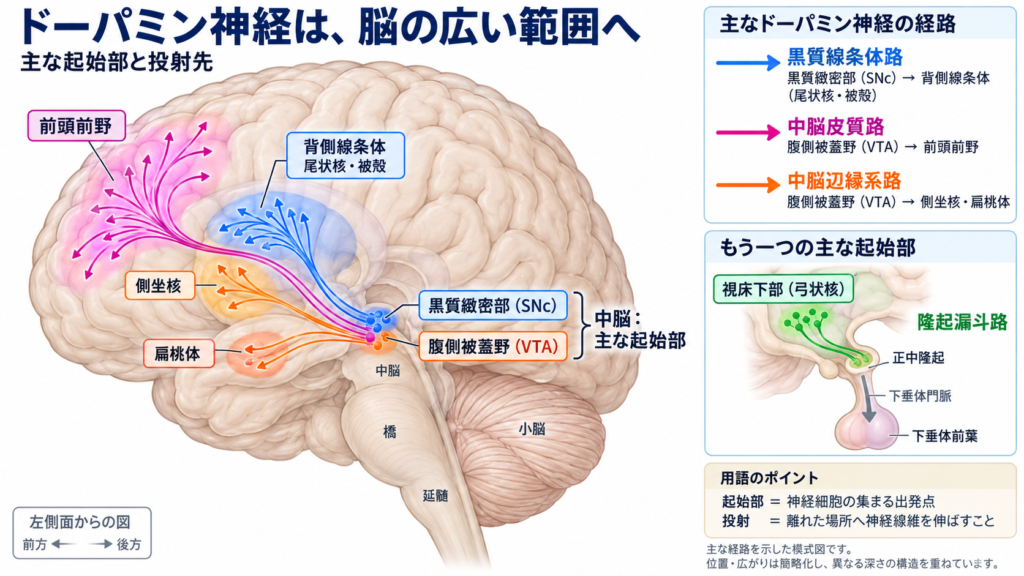
グルタミン酸やGABAなどと違って、ドーパミンは、特定の部位で作られています(中脳)。そしてそこから脳の広い範囲に投射して、気分、注意、意欲などに影響を与えています。そのために「広範囲調節系」と呼ばれたり、ドーパミンを「神経修飾物質」などと呼ばれたりします。ドーパミンの機能については、各論のところで詳しく書く予定です。
5.4.4 ノルアドレナリン
合成は、上のドーパミンの合成のイラストを参照して下さい。ドーパミンから合成されます。グルタミン酸やGABAなどと違って、ノルアドレナリンは、特定の部位で作られています(主に橋の青班核)。そしてそこから脳の広い範囲に投射して、気分、注意、覚醒などに影響を与えています。そのために「広範囲調節系」と呼ばれたり、ノルアドレナリンを「神経修飾物質」などと呼ばれたりします。ノルアドレナリンの機能については、各論のところで詳しく書く予定です。
5.4.5 セロトニン
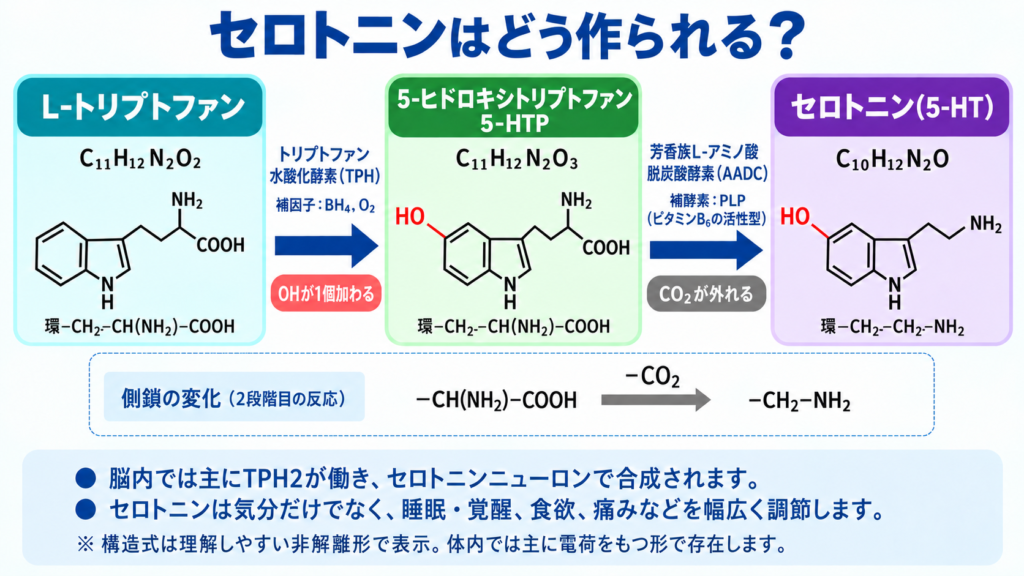
セロトニンは、トリプトファンという必須アミノ酸から作られます。トリプトファンは、食事のタンパク質を摂ることで体内に摂取します。
L-トリプトファン(C₁₁H₁₂N₂O₂)
↓ トリプトファン水酸化酵素
5-ヒドロキシトリプトファン/5-HTP(C₁₁H₁₂N₂O₃)
↓ 芳香族L-アミノ酸脱炭酸酵素
セロトニン/5-HT(C₁₀H₁₂N₂O)
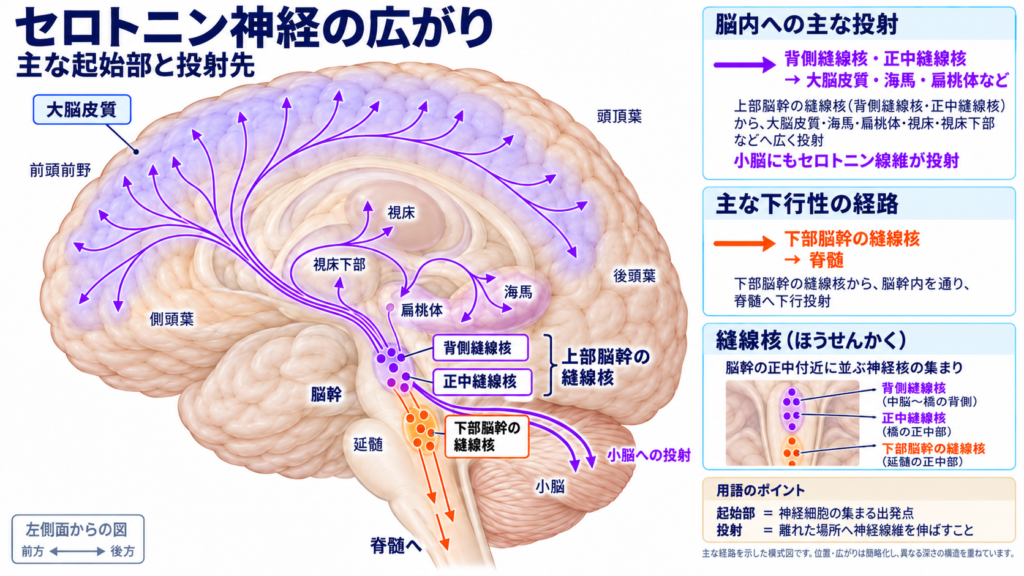
脳内のセロトニンニューロンの細胞体は、特定の部位にあり(脳幹の縫線核群)、そしてそこから脳の広い範囲に投射しています。そのために「広範囲調節系」と呼ばれたり、セロトニンを「神経修飾物質」などと呼んだりします。主に脳幹の縫線核群にあります。気分だけでなく、睡眠・覚醒、食欲、痛み、体温調節など多くの機能を調節します。セロトニンの機能については、各論のところで詳しく書く予定です。
「セロトニン=幸せを作る物質」と単純化されることがありますが、実際には複数種類の受容体があり、作用は脳の場所や受容体の種類によって異なります。
5.4.6 アセチルコリン
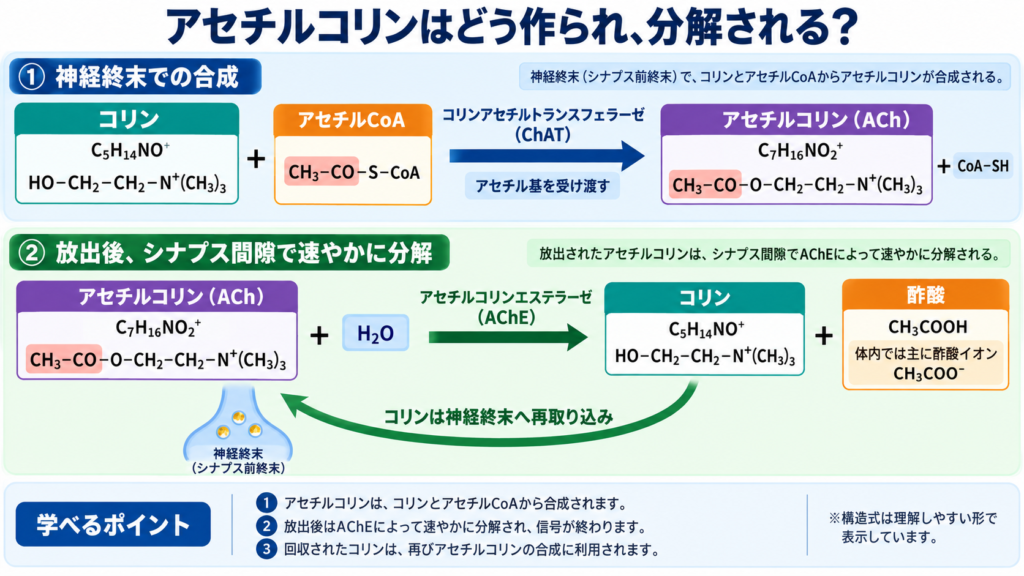
アセチルコリンは、コリンとアセチルCoAから作られます。コリンは、食事中の肉や魚、大豆などに含まれます。アセチルCoAは、グルコースの代謝などで合成されます。
コリン(C₅H₁₄NO⁺)+アセチルCoA
↓ コリンアセチルトランスフェラーゼ
アセチルコリン(C₇H₁₆NO₂⁺)
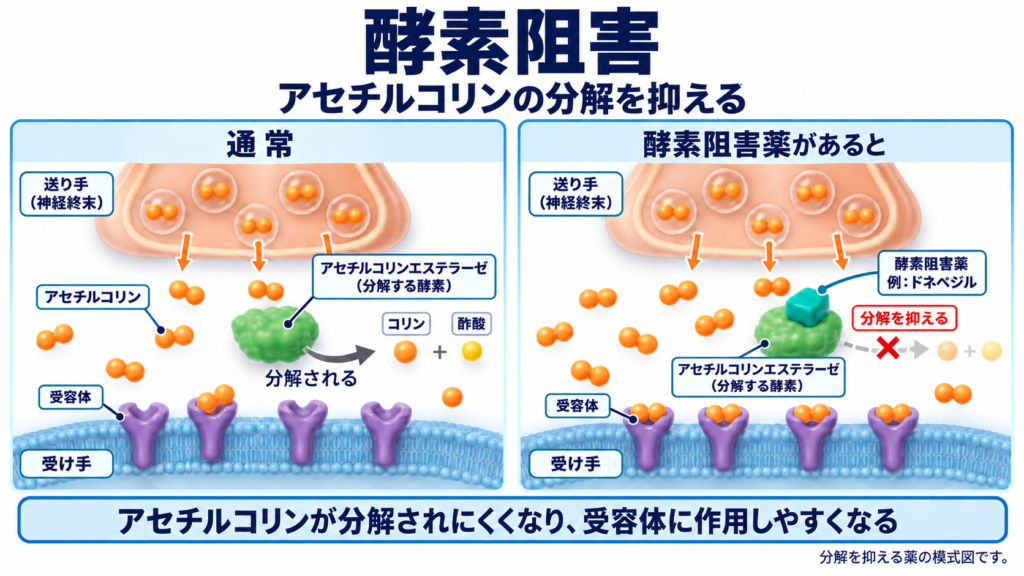
放出されたアセチルコリンは、アセチルコリンエステラーゼによって速やかに分解されます。
アセチルコリン+水
↓ アセチルコリンエステラーゼ
コリン+酢酸
生じたコリンの多くは神経終末に再び取り込まれ、アセチルコリンの合成に再利用されます。
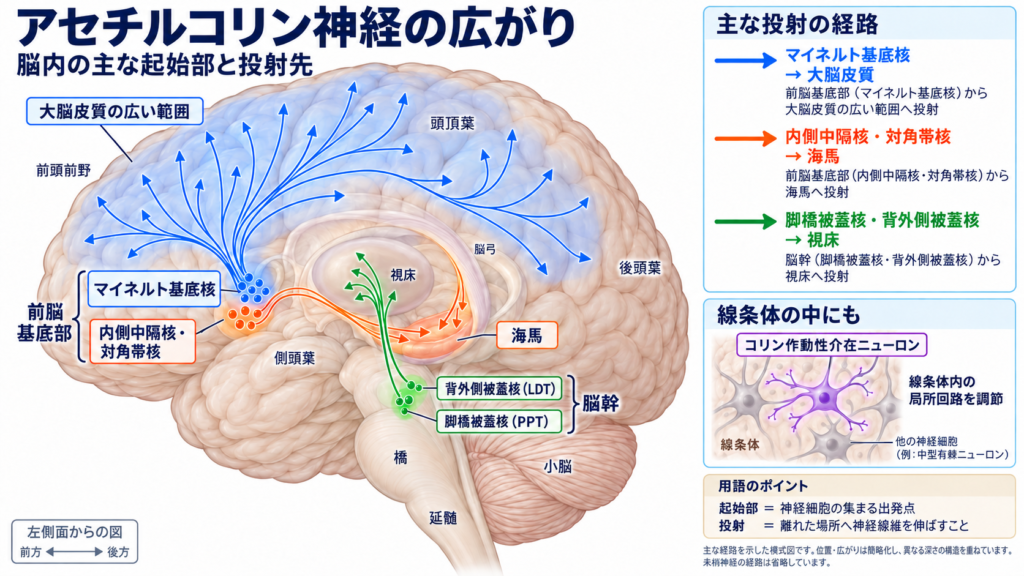
アセチルコリンは、脳内だけでなく、神経筋接合部、自律神経節、副交感神経の節後線維などでも重要な神経伝達物質です。アルツハイマー型認知症では、マイネルト基底核のコリンニューロンが脱落しており、そのために現在のアルツハイマー型認知症の治療薬は、主にこのアセチルコリンの機能を高めることで、進行を遅らせることを目指している。
5.4.7 ヒスタミン
ヒスタミンは、ヒスチジンというアミノ酸から作られます。魚介類、肉、乳製品、大豆などから摂取されます。
L-ヒスチジン(C₆H₉N₃O₂)
↓ ヒスチジン脱炭酸酵素
ヒスタミン(C₅H₉N₃)
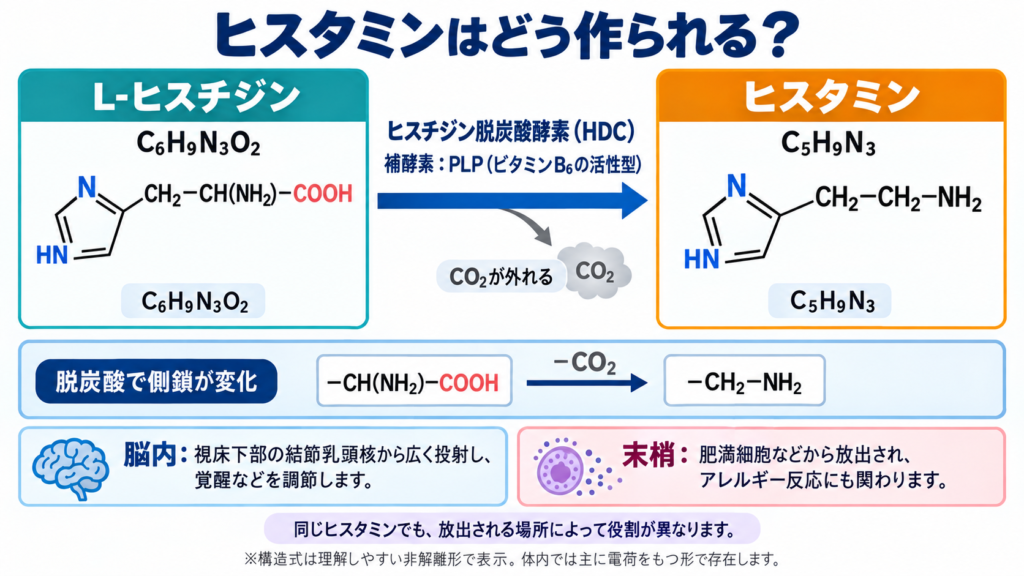
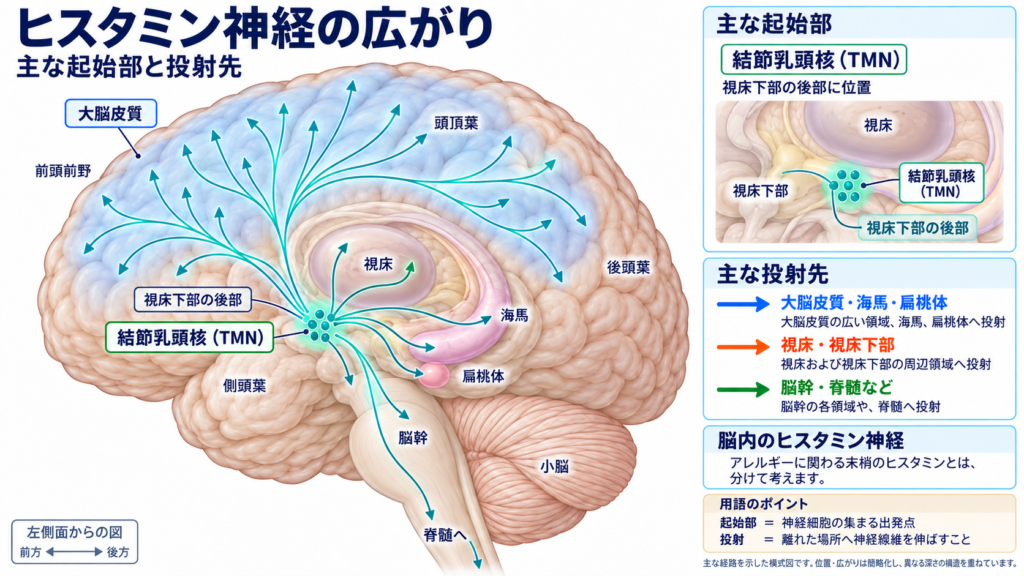
脳内のヒスタミンニューロンの細胞体は、脳幹ではなく、主に視床下部の結節乳頭核にあります。そこから脳の広い範囲へ投射し、覚醒状態の維持などに関係します。抗ヒスタミン薬の一部で眠気が生じるのは、脳内のヒスタミンH₁受容体を遮断するためです。
神経伝達を止める仕組み
神経伝達物質は、放出されたまま残り続けるわけではありません。信号を終わらせる方法は、物質によって異なります。
- ドーパミン、ノルアドレナリン、セロトニン:主にトランスポーターによる再取り込み
- アセチルコリン:アセチルコリンエステラーゼによる分解
- グルタミン酸、GABA:ニューロンやグリア細胞への取り込み
- 一部の伝達物質:シナプス周囲への拡散
抗うつ薬などの向精神薬の多くは、神経伝達物質そのものを「増やす薬」というより、再取り込み、分解、受容体への結合などを変化させ、神経伝達の強さや持続時間を調節する薬だと考えると理解しやすくなります。
5.5 受容体
5.5.1 受容体とは
神経細胞(ニューロン)は、神経伝達物質を使って情報をやり取りしています。電気信号が軸索を伝わり、軸索の終末まで来ると、神経伝達物質を放出するのでしたね。
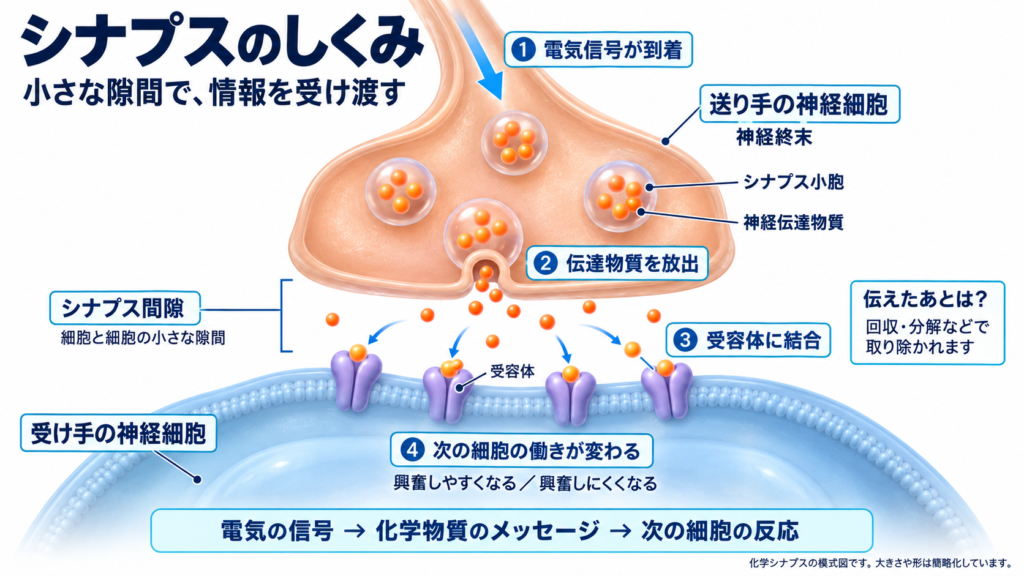
その物質を受け取るのが「受容体」です。伝達物質をメッセージにたとえるなら、受容体はそれを読み取り、細胞の反応につなげる装置です。 ここで取り上げる神経伝達物質の受容体は、細胞膜に埋め込まれたタンパク質です。
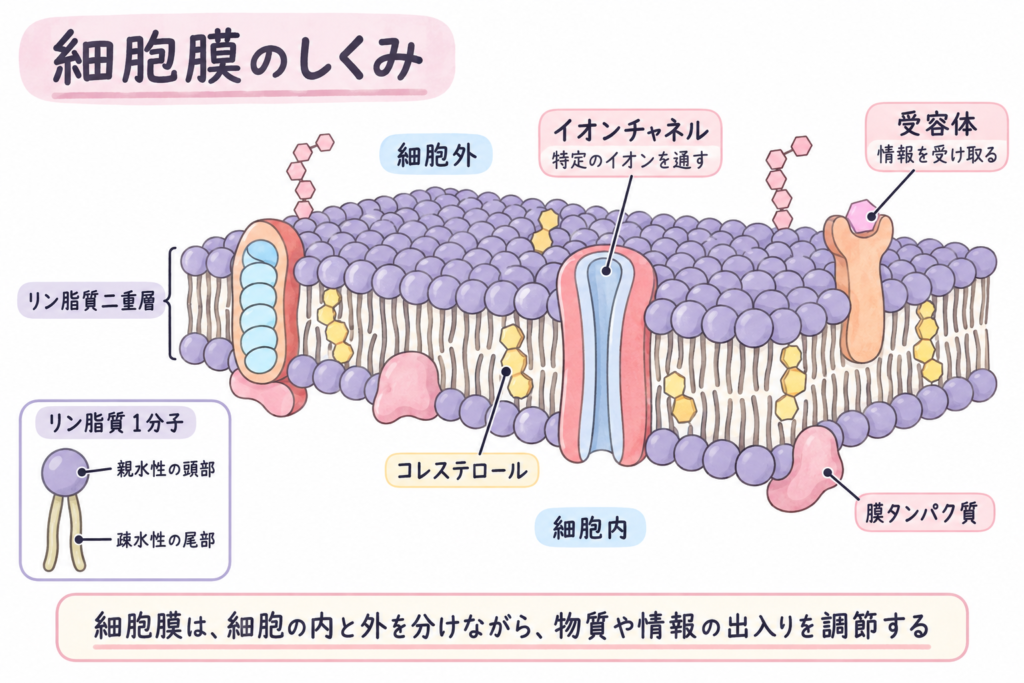
細胞膜は、脂質という分子が二重に並んだ薄い膜です。硬い壁ではなく、構成する分子が動ける柔らかな膜で、その中に受容体などのタンパク質が組み込まれています。「脂質の海に浮かぶ装置」と考えるとイメージしやすいでしょう。ただし、水面に浮くように膜の上に乗っているのではなく、膜をまたぐように埋まっています。
伝達物質が細胞の外側から受容体に結合すると、受容体の形や働きが変わり、細胞の内側へ信号が伝わります。伝達物質そのものが、受容体を通って細胞内へ入る必要はありません。
5.5.2 受容体の種類
受容体には、受け取りやすい伝達物質があります。セロトニンにはセロトニン受容体、ドーパミンにはドーパミン受容体というように、対応するグループがあります。
しかし、「一つの伝達物質に、一種類の受容体」というわけではありません。同じグループの中にも「サブタイプ」と呼ばれる種類があり、結合した後の反応が異なります。鍵と鍵穴にたとえるなら、同じ鍵で操作できても、その先につながる装置が違うのです。なお、実際の結合は完全な一対一ではなく、似た物質や薬が同じ受容体に結合することもあります。
5.5.3 すぐに通り道を開くタイプと、細胞内へ取り次ぐタイプ
受容体の働き方は、大きく二つに分けられます。
| 種類 | 結合後の仕組み | 反応の特徴 |
| イオンチャネル型 | 受容体自体がイオンの通り道になり、結合すると開く | 一般に速く、ミリ秒単位で始まる |
| Gタンパク質共役型 | 細胞内のGタンパク質へ信号を取り次ぎ、イオンチャネルや酵素などの働きを変える | 一般に前者よりゆっくりで、長く続く反応もある |
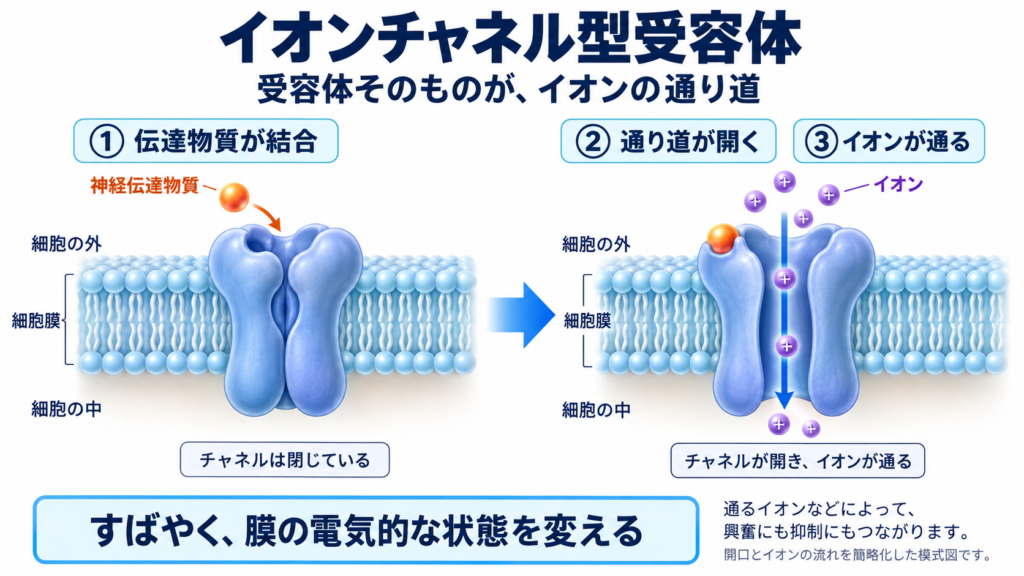
イオンチャネル型は「合図で直接開くゲート」です。ナトリウムイオンや塩化物イオンなどが通ることで、細胞膜の電気的な状態が変わります。ただし、速い反応がすべて興奮につながるわけではありません。通るイオンの種類と細胞内外の状態によって、神経を興奮しやすくする場合も、興奮を抑える場合もあります。
Gタンパク質共役型は「細胞内の担当者へ指示を出す装置」です。Gタンパク質などがイオンチャネルの開閉や酵素の働きを調節し、ときには遺伝子の働きにも影響します。「遅い」といっても数日かかるという意味ではなく、比較的速くイオンチャネルを調節するものもあります。
例えば、セロトニン受容体の5-HT3はイオンチャネル型ですが、5-HT1AはGタンパク質共役型です。5-HT1Aは、多くの場合、その神経細胞の活動を抑える方向に働きます。同じセロトニンでも、受け取る側の仕組みによって反応が変わるのです。
5.5.4 自己受容体とヘテロ受容体は「誰の信号を受け取るか」の分類
受容体は、情報を受け取る側だけにあるわけではありません。伝達物質を放出する側の神経にもあります。
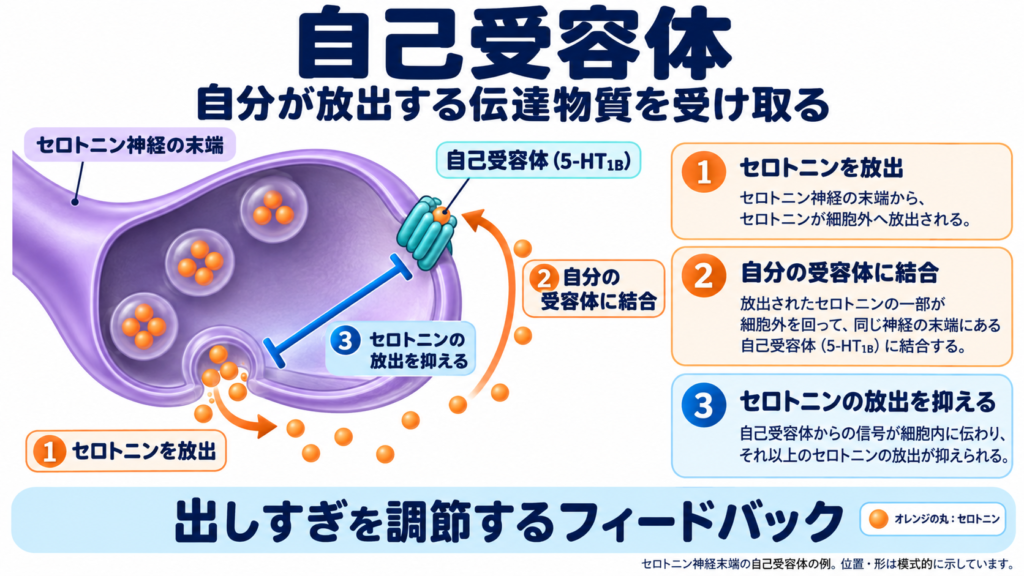
自己受容体は、その神経が放出する伝達物質に反応する受容体です。例えば、セロトニンを放出する神経が持つセロトニン受容体です。多くは活動や放出を抑える方向に働き、「出しすぎていないか」を調節します。神経の末端だけでなく、細胞体や樹状突起にもあります。
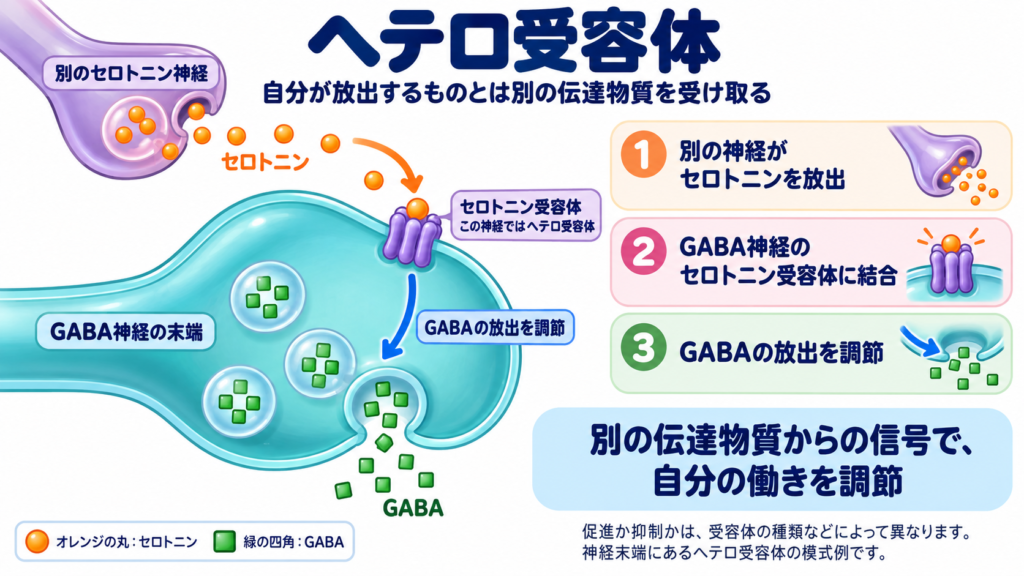
ヘテロ受容体は、その神経が放出するものとは別の伝達物質に反応する受容体です。例えば、GABAを放出する神経にあるセロトニン受容体は、セロトニンの信号を受け取るヘテロ受容体です。神経の末端にあれば、GABAの放出を調節することがあります。
ここで大切なのは、これは「速い・遅い」とは別の分類だということです。同じ5-HT1A受容体でも、セロトニン神経にあれば自己受容体、それ以外の神経にあればヘテロ受容体として働きます。
5.5.5 どこに、どれくらいあるかも大切
受容体の働きは、その種類だけでは決まりません。細胞体や樹状突起にあれば神経の興奮しやすさに関わり、神経の末端にあれば伝達物質の放出を調節します。シナプスのすぐ近くにあるか、少し離れているかでも、届く伝達物質の濃度やタイミングが違います。
また、同じ抑制作用でも、興奮を伝える神経に働く場合と、周囲を抑えている神経に働く場合では、回路全体への影響が変わります。「ブレーキ役の神経を抑える」と、周囲の神経はかえって活動しやすくなることがあるのです。
受容体の数も一定ではありません。細胞膜に追加されたり、細胞内へ取り込まれたり、膜の中で移動したりします。同じ量の伝達物質でも、膜上で働ける受容体の数や反応しやすさによって、反応の大きさは変わります。ただし、受容体が2倍なら反応も2倍、という単純な関係ではありません。刺激が続くと反応しにくくなる「脱感作」や、その先の細胞内の仕組みも関係します。
つまり、神経の反応を考えるときには、「伝達物質が多いか少ないか」だけでなく、受容体が「何を受け取るか」「どう反応するか」「どこにあるか」「いくつ働いているか」を見る必要があります。これが、同じ神経伝達物質がさまざまな働きを持つ理由の一つです。
5.6 シナプス
シナプスとは、神経細胞と神経細胞のつなぎ目のことです。昔は、神経細胞と神経細胞がダイレクトに繋がっているのか、隙間があるのかが学会でも大論争になっていたそうです。隙間がある方が、勝利を収めました。現在では、常識的なこととなっています。神経細胞の活動電位が、神経線維の端っこ(神経終末)までくると、シナプス小胞という袋に入っていた神経伝達物質が、放出されます。それが次の神経細胞の受容体に結合して、興奮を伝え、その後、受容体を離れて元の神経細胞の末端に取り込まれて再利用されます。以下の説明は、上記の受容体や、神経伝達物質の項目と重複しますが、再掲しますね。
# シナプスの受容体――「すぐに開く通り道」と「合図をつなぐ仕組み」
神経細胞どうしは、シナプスで情報を受け渡しています。送り手から放出された神経伝達物質は、小さな隙間を渡り、受け手の神経細胞にある「受容体」に結合します。では、受容体がメッセージを受け取ると、その先では何が起こるのでしょうか。受容体は、細胞を包む「細胞膜」に組み込まれたタンパク質です。膜の外側で神経伝達物質を受け取り、その情報を細胞の内側へ伝えます。膜に「浮かぶ」という表現もできますが、水面に浮いた物のように上に乗っているのではありません。膜を貫くように埋め込まれており、周囲のタンパク質につなぎ留められているものもあります。
シナプスの受容体には、大きく分けて「イオンチャネル型」と「Gタンパク質共役型」という2つの仕組みがあります。
## ① イオンチャネル型――受容体そのものが通り道
イオンチャネル型受容体は、神経伝達物質を受け取る部分と、イオンが通る道が一体になっています。「イオン」とは、電気を帯びた小さな粒のことです。神経伝達物質が結合すると、受容体の形が変わり、通り道が開きます。そこをイオンが通ることで、細胞膜の内外の電気的な状態がすばやく変わります。いわば、「合図を受けるとすぐに開くゲート」です。ただし、ゲートが開けば必ず神経細胞が興奮するわけではありません。通るイオンの種類や細胞の状態によって、次の電気信号を出しやすくする場合も、出しにくくする場合もあります。プラスイオンが流入すれば、興奮の方向に行きますし、マイナスイオンが流入すれば、抑制の方向に行きます。
Gタンパク質共役型受容体は、それ自体にはイオンの通り道がありません。神経伝達物質が結合すると、細胞の内側にある「Gタンパク質」という仲介役へ合図を伝えます。「共役」とは、ここでは「連携して働く」という意味です。Gタンパク質は、別のイオンチャネルの開閉を調節したり、酵素に働きかけたりします。酵素を介する経路では、「セカンドメッセンジャー」と呼ばれる細胞内の伝達役の量などが変わり、さらに合図が伝わります。こちらは、「合図を受けた担当者が、細胞の中のさまざまな働きを調節する仕組み」です。イオンチャネル型に比べて、一般に反応の立ち上がりはゆっくりで、作用が長く続く傾向があります。ただし、Gタンパク質が直接チャネルを調節するなど、比較的速い経路もあります。
## 同じ神経伝達物質でも、受容体が違えば反応が変わる
一つの神経伝達物質に対応する受容体は、一種類とは限りません。たとえばGABAには、イオンチャネル型の「GABA_A受容体」と、Gタンパク質共役型の「GABA_B受容体」があります。同じGABAでも、受け取る受容体によって、その後の伝わり方や速さが変わるのです。受容体には、さらに細かな種類である「サブタイプ」があります。また、どの細胞のどこにあるか、どれくらいの数があるかによっても反応は変わります。送り手側にある受容体は、神経伝達物質の放出量を調節することもあります。
まずは、『「受容体そのものがゲートになる型」と「細胞内の仲介役に合図を渡す型」がある』と押さえると、シナプスの仕組みが理解しやすくなります。
5.7 シナプスに働きかける薬
向精神薬はどのように作用するのか?精神科・心療内科で用いられる向精神薬の多くは、シナプスでの情報の伝わり方を調節することで作用します。神経伝達物質が受容体に働きかけやすくしたり、特定の受容体の反応を抑えたりすることで、神経回路の働きに影響を与えます。ただし、「神経の働きを強めればよい」「抑えればよい」という単純な話ではありません。どの伝達物質の、どの受容体に、どの場所で働きかけるかによって、結果は変わります。
5.7.1 再取り込み阻害薬 伝達物質の「回収」を抑える――
神経終末から放出された神経伝達物質は、受容体に結合した後、やがてシナプスの隙間から取り除かれます。その方法の一つが、送り手の神経細胞への「再取り込み」です。回収された物質の一部は再利用されます。ただし、すべての伝達物質が同じ方法で回収されるわけではなく、周囲の細胞への取り込みや酵素による分解もあります。
再取り込みを担うのは、細胞膜にある「トランスポーター」というタンパク質です。これは、メッセージを受け取る受容体とは別の、いわば回収役です。
再取り込み阻害薬は、この回収役の働きを抑えます。すると、放出された伝達物質がシナプスの隙間などにとどまりやすくなり、受容体に作用しやすくなります。伝達物質が永久に残ったり、一つの受容体に結合し続けたりするわけではありません。たとえば、抗うつ薬のSSRIは主にセロトニンの、SNRIはセロトニンとノルアドレナリンの再取り込みを阻害します。
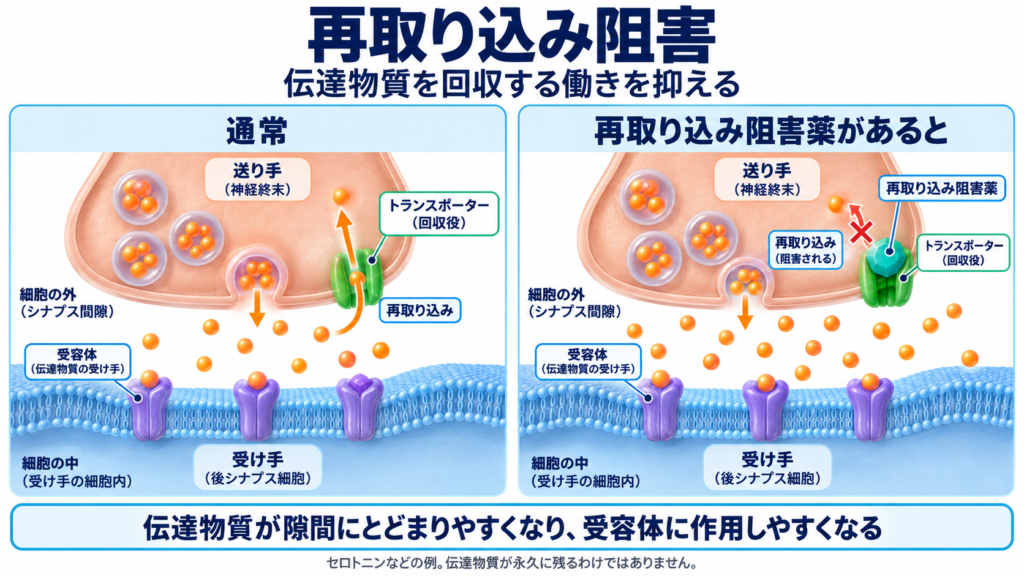
図の説明:薬が抑えるのは、送り手側の「回収役」です。受け手の受容体を直接刺激する仕組みとは区別して考えましょう。
5.7.2 アゴニスト(作動薬) 受容体を直接働かせる
神経伝達物質のように、受容体に結合して、その受容体を働かせる物質を「アゴニスト(作動薬)」と呼びます。
たとえるなら、受容体のスイッチを入れる役割です。ただし、「受容体のスイッチが入ること」と、「神経細胞が興奮すること」は同じではありません。抑制に関わる受容体を働かせれば、神経細胞は電気信号を出しにくくなることもあります。
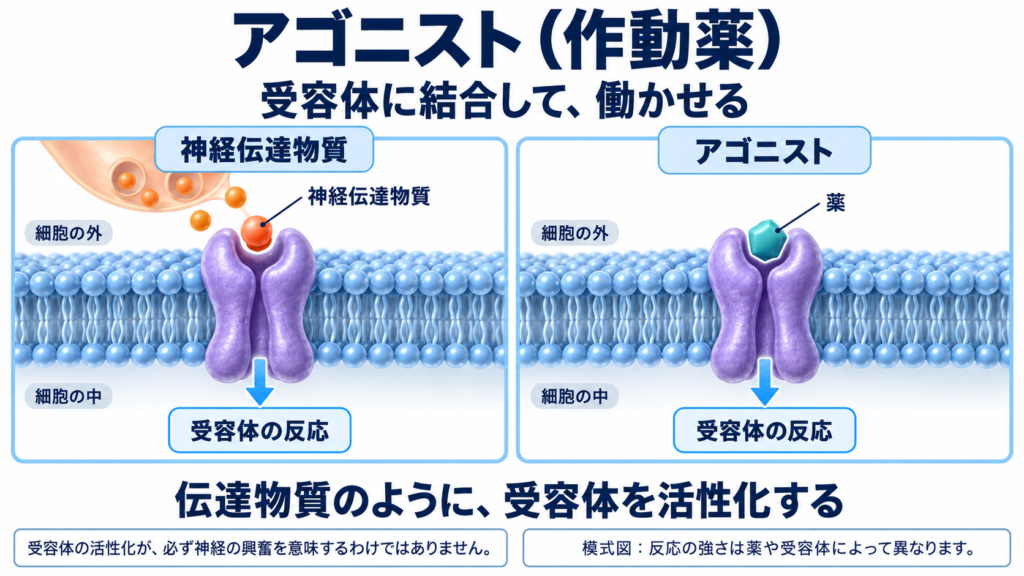
図の説明:神経伝達物質の代わりに薬が結合しても、受容体に合図を伝えられます。アゴニストには、以下に説明する部分作動薬も含まれます。
5.7.3 アンタゴニスト(拮抗薬) 受容体への働きかけを妨げる
「アンタゴニスト(拮抗薬)」は、受容体に結合して、神経伝達物質などによる受容体の活性化を妨げる物質です。ここでは、薬自体は受容体を活性化しない、基本的なタイプを説明します。代表的な仕組みが、伝達物質と同じ結合場所を取り合う「競合的拮抗」です。薬がその場所を占めている間、伝達物質はそこに結合しにくくなります。
多くの抗精神病薬には、ドパミンD₂受容体の働きを遮断する作用があります。ただし、すべての抗精神病薬が同じ仕組みで働くわけではありません。また、受容体を遮断することは、脳全体を一律に抑えることでもありません。
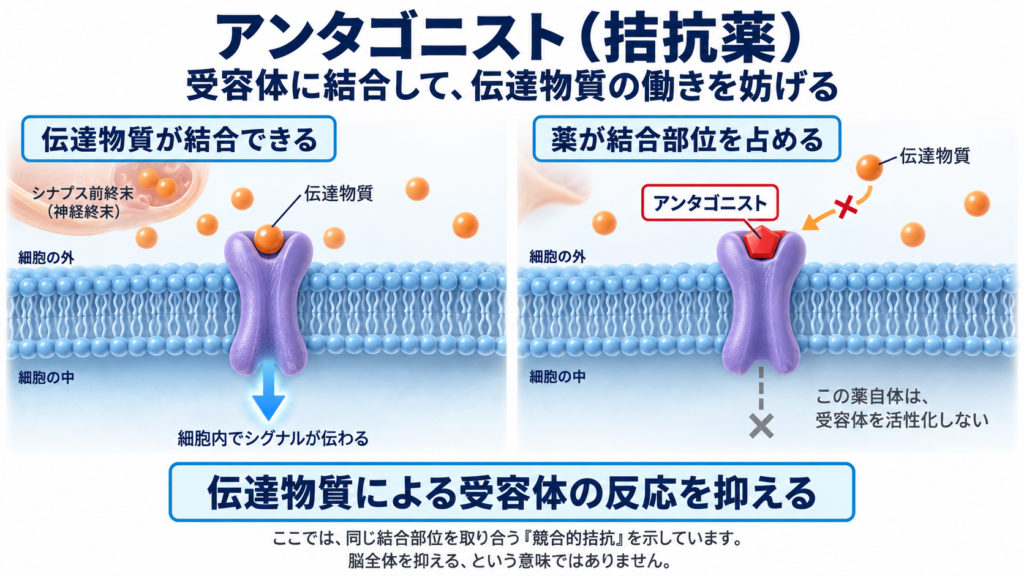
図の説明:薬が結合部位を占め、伝達物質の作用を妨げます。この図は競合的拮抗の模式図で、すべての拮抗作用を表しているわけではありません。
5.7.4 パーシャルアゴニスト(部分作動薬) 働かせる力に上限がある
「パーシャルアゴニスト(部分作動薬)」も、受容体に結合して働かせます。ただし、同じ条件で比べると、十分な量を作用させても、「完全作動薬」ほど大きな反応を起こせません。「半分だけ結合する」「必ず50%の強さで作用する」という意味ではありません。受容体に結合する力と、結合した受容体を働かせる力は、別の性質です。
部分作動薬は、それ自体で受容体を働かせる一方、完全作動薬と同じ場所を取り合うと、完全作動薬だけの場合より反応を弱めることもあります。実際の反応は、それぞれの物質の量や受容体への結合しやすさ、細胞の条件によって変わります。
抗精神病薬のアリピプラゾールは、ドパミンD₂受容体に対する部分作動薬の例です。「多すぎれば減らし、少なければ増やす」と説明されることもありますが、脳内の状態を測定して自動的に正常値へ戻す仕組みではありません。
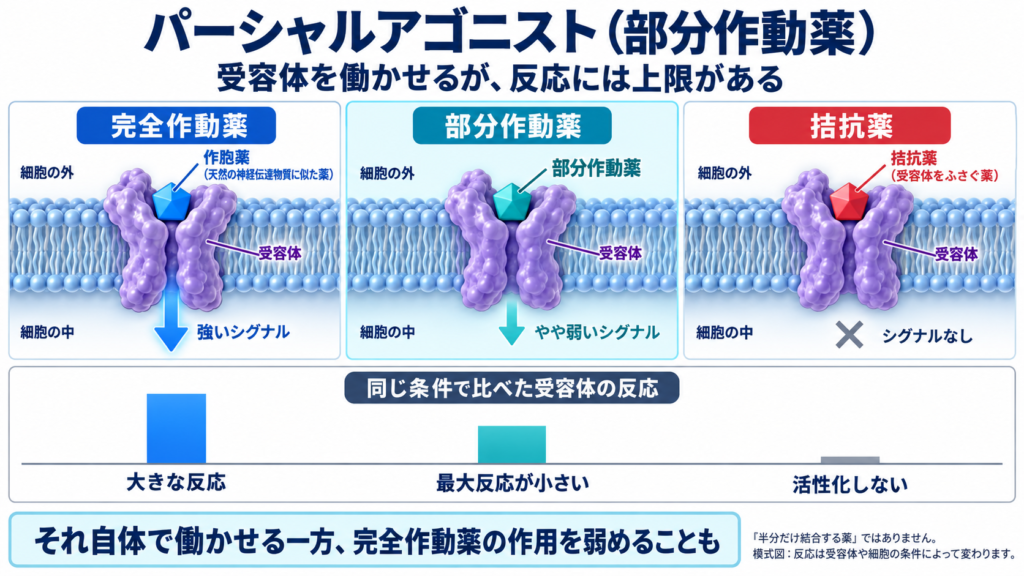
図の説明:同じ条件で比べた受容体の反応を示しています。棒の高さは薬の治療効果や安全性の優劣を表すものではありません。
5.7.5 他の向精神薬のシナプスへの働き方
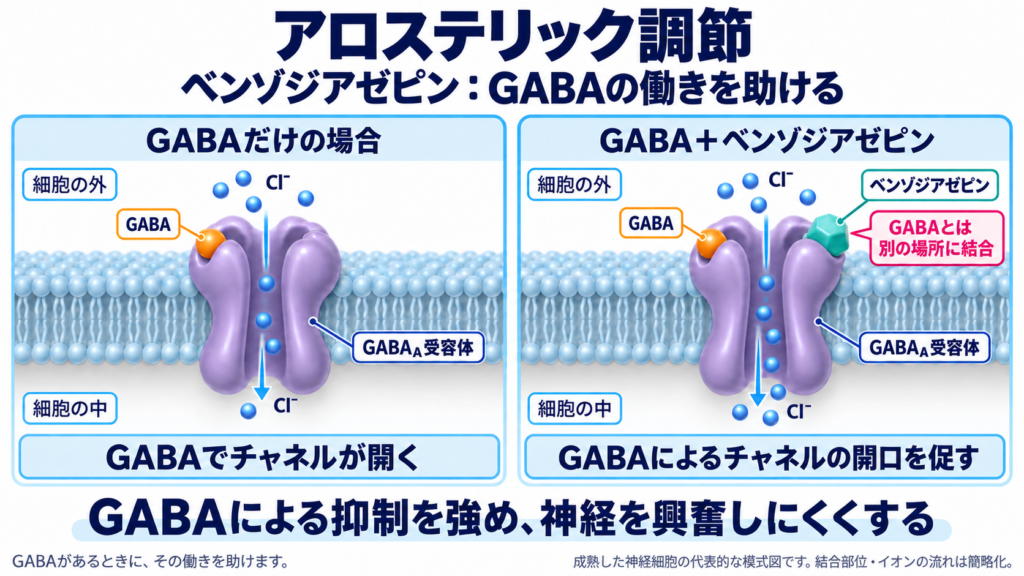
受容体には、伝達物質が結合する場所とは別の場所に薬が結合し、伝達物質の働きを助ける仕組みもあります。これを「正のアロステリック調節」といいます。
たとえばベンゾジアゼピン系の抗不安薬・睡眠薬は、GABA_A受容体の別の場所に結合し、GABAの働きを強めます。通常の説明では、GABAの代わりに単独で受容体を作動させる薬というより、「GABAによる抑制を助ける薬」と考えるとわかりやすいでしょう。
また、薬が作用する受容体は受け手側だけにあるとは限りません。送り手側にある自己受容体などを介して、神経伝達物質の放出量に影響する薬もあります。伝達物質を分解する酵素に作用する薬などもあり、一つの薬が複数の仕組みを持つことも珍しくありません。以下に、アルツハイマー型認知症の治療薬であるドネペジルを例に酵素阻害の作用をイラストにします。
5.7.6 シナプス以外にも作用する向精神薬
シナプスの隙間や受容体への作用だけでは、向精神薬の働きすべてを説明できません。
「細胞内の情報伝達への作用」気分安定薬のリチウムでは、細胞内の酵素や情報伝達経路への作用などが研究されています。ただし、気分を安定させる仕組みの全体像は、まだ十分に解明されていません。
「神経細胞の電気的な活動への作用」気分安定薬として用いられる一部の抗てんかん薬では、電位依存性ナトリウムチャネルなどへの作用が知られています。これは、先ほどの「伝達物質が結合して開くチャネル」とは異なる種類で、細胞膜の電圧変化に応じて開閉します。たとえばラモトリギンでは、ナトリウムチャネルの抑制による神経活動や伝達物質放出の調節が提案されていますが、治療効果とのつながりには未解明な点もあります。
これらの作用も、最終的にはシナプスや神経回路の働きに影響します。「シナプスに働く薬」と「シナプス以外に働く薬」を、完全に別々に分けられるわけではありません。
5.7.7 最初の薬理作用と、症状の改善のタイムラグ(時間的遅れ)について
薬が受容体やトランスポーターに作用し始める時期と、症状の改善を実感する時期は、必ずしも一致しません。たとえば抗うつ薬では、効果を評価するまでに数週間かかることがあります。受容体や神経回路が時間をかけて変化することなども、治療効果に関わると考えられています。また、薬が特定の伝達物質に作用するからといって、病気の原因がその物質の単純な不足や過剰だけで説明できるわけではありません。
シナプスの仕組みを知ることは、薬が最初にどこへ働きかけるのかを理解する手がかりになります。その先の症状改善には、神経回路全体の変化も関わっています。
5.8 向精神薬の薬物動態
5.8.1 向精神薬は、どうやって脳に届くの?――薬の体内旅行(薬物動態)
これまで、向精神薬が受容体やシナプスに働きかける仕組みを見てきました。では、飲んだ薬は、どうやって脳まで届くのでしょうか。そして、役目を終えた薬はどこへ行くのでしょうか。薬が体に入り、体内を移動し、やがて体の外へ出ていく過程を「薬物動態」といいます。難しそうな言葉ですが、いわば「薬の体内旅行」です。
その流れは、大きく「吸収」「分布」「代謝」「排泄」の4つに分けられます。ただし、この4つが一回ずつ順番に終わるわけではありません。体の中では、いくつもの過程が同時に進んでいます。
5.8.2 薬の吸収 飲み薬は、主に小腸から吸収される
錠剤やカプセルを飲むと、胃や腸で中身が溶け、薬の成分が消化管の壁を通って体内に入ります。多くの飲み薬で、主な吸収の場所は小腸です。小腸にはひだや細かな突起があり、吸収できる面積が広くなっています。ここで大切なのは、錠剤がそのまま血管の中を流れるわけではない、ということです。溶けた薬の成分が、分子という小さな単位で吸収されます。
吸収のされ方は、食事や薬の性質、剤形によって変わります。「食後」「空腹時」などの指定には、その薬に応じた理由があります。
小腸から吸収された多くの薬は、「門脈」という血管を通って、まず肝臓へ運ばれます。その後、心臓や肺を含む血液循環に入り、全身へ広がります。肝臓や腸の壁では、薬の一部が早い段階で代謝されることがあります。これを「初回通過効果」と呼びます。つまり、飲んだ薬がすべて同じ量のまま全身へ届くとは限りません。
全身の血液循環に、元の薬の形でどれくらい届くかを示す指標が「バイオアベイラビリティ」です。飲み薬では、吸収されなかった分や、全身へ届く前に代謝された分などの影響を受けます。
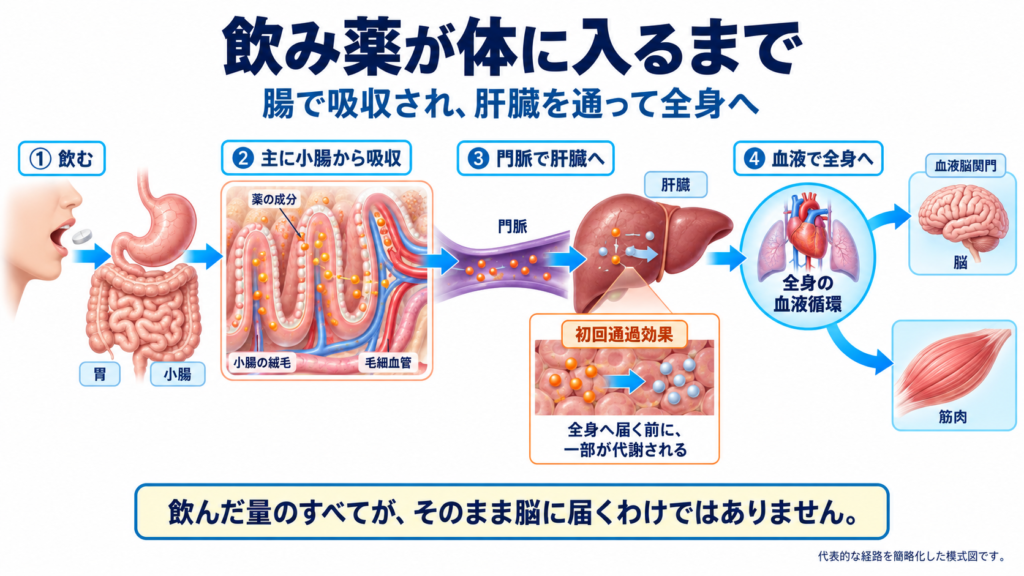
図の説明:口から入った薬は、主に小腸で吸収され、門脈・肝臓を通って全身へ向かいます。図は代表的な経路を簡略化しています。
5.8.3 薬の分布 血液が薬を運び、毛細血管で組織とやり取りする
血液に入った薬は、全身を循環します。細い枝の先にある「毛細血管」は、血液と周囲の組織が物質をやり取りする場所です。薬が血液から各組織へ移り、また戻ってくることを「分布」といいます。薬は脳だけに向かうのではなく、筋肉や脂肪、肝臓、腎臓などにも分布します。だから便秘など、他の部位で副作用が出たりします。また、血液中では、一部が血漿タンパク質に結合しています。一般に、結合していない「遊離型」の薬が、組織へ移動したり、受容体に作用したりするうえで重要です。
5.8.4.脳の入口には「血液脳関門」がある
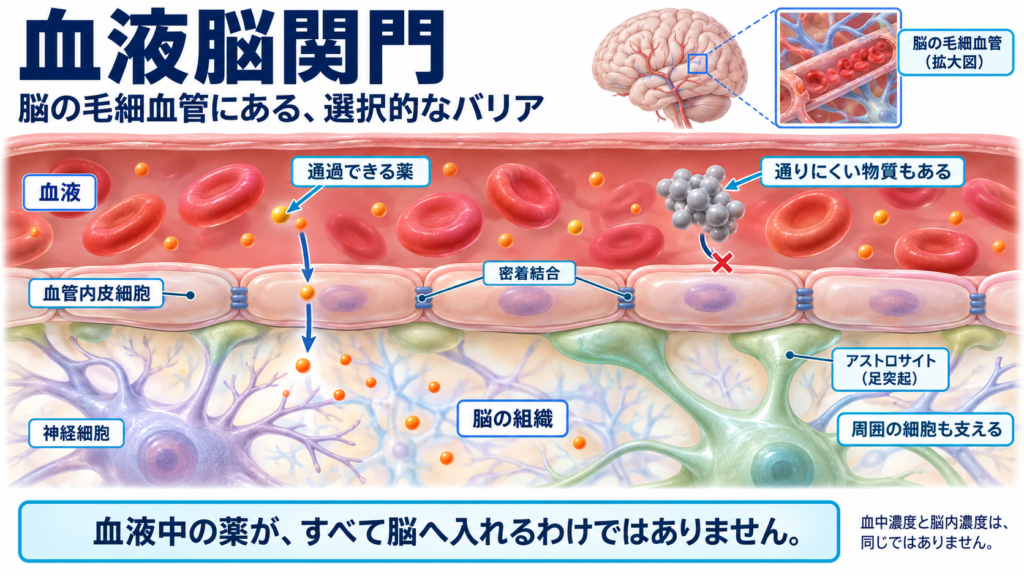
脳の毛細血管には、物質が通るのを厳しく調節する仕組みがあります。これが「血液脳関門」です。血管の内側をつくる細胞どうしが、しっかり結びついています。周囲の細胞も協力して、血液から脳へ物質がむやみに入り込むのを防いでいます。脳は重要な臓器なので、なんでも脳に到達しないように選んでいます。
ただし、何も通さない壁ではありません。薬が通りやすいかどうかは、脂に溶けやすいか、どのような大きさや電荷を持つか、運搬・排出の仕組みの影響を受けるかなどによって変わります。
脳に作用する向精神薬は、この関門を越えて作用部位へ届き、受容体などに働きかけます。血液中に薬があることと、脳内に同じ濃度で薬があることは別です。静脈注射で直接血液に入れても、血液脳関門を通らずに脳へ入れるわけではありません。
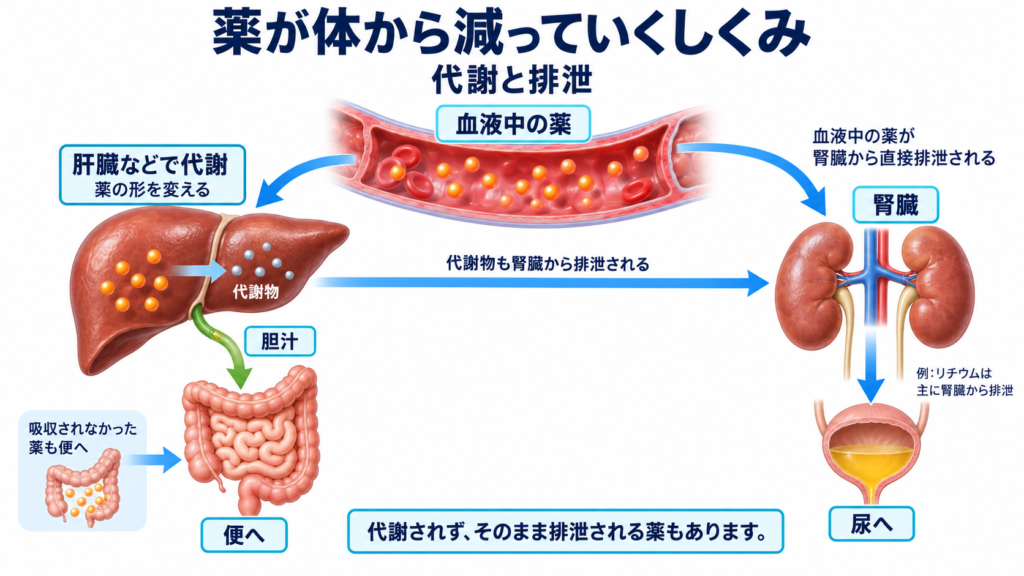
5.8.5.薬の代謝 肝臓などで「形を変え」、尿や便から出ていく
薬の化学的な形を変える過程を「代謝」といいます。肝臓が主な場所ですが、腸の壁など、ほかの場所でも起こります。「分解」と説明してもよい場面はありますが、薬を細かく壊すだけでなく、別の物質を結びつける変化なども含むため、「形を変える」と考えるほうが正確です。代謝でできた物質を「代謝物」と呼びます。代謝されると作用が弱くなる薬もあれば、代謝物にも作用がある薬もあります。
5.8.6 薬の排泄 薬そのものや代謝物が体の外へ出ることが「排泄」です。
「尿へ」:血液中の薬や代謝物が腎臓で処理され、尿として出ていきます。
「便へ:肝臓から胆汁に出された薬や代謝物が腸へ運ばれ、便として出ていく経路があります。消化管で吸収されなかった薬も、便に含まれます。
ただし、すべての薬が「肝臓で代謝されてから、腎臓へ」という順序を通るわけではありません。たとえばリチウムは、ほとんど代謝されず、主に腎臓から排泄されます。代謝や排泄は、薬が脳で作用し終わるのを待って始まるのではありません。循環・分布・作用と並行して進んでいます。
5.8.7 血中濃度 「血液の中に、どれくらい薬があるか」
一定量の血液や血漿に、薬がどれくらい含まれているかを表すのが「血中濃度」です。
飲み薬では、吸収が進むにつれて濃度が上がり、やがて頂点に達します。その後は、分布や代謝・排泄の影響で下がっていきます。上がり方や下がり方は、薬や製剤によって異なります。下の図を見て下さい。
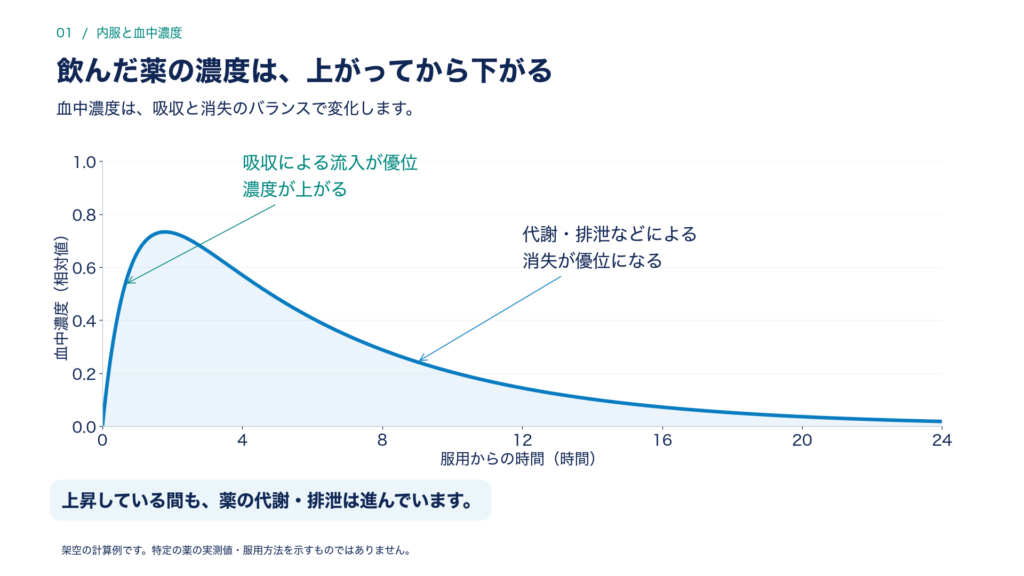
血中濃度は、効果や副作用を考える手がかりです。ただし、濃度だけで効果が決まるわけではありません。脳への届き方、受容体との結びつき方、作用を持つ代謝物、神経回路の変化なども関わります。また、どの向精神薬にも共通する「この範囲なら必ず効いて安全」という濃度の帯があるわけではありません。リチウムなど、血中濃度の測定が治療上とても重要な薬もあれば、症状や副作用を中心に調節する薬もあります。
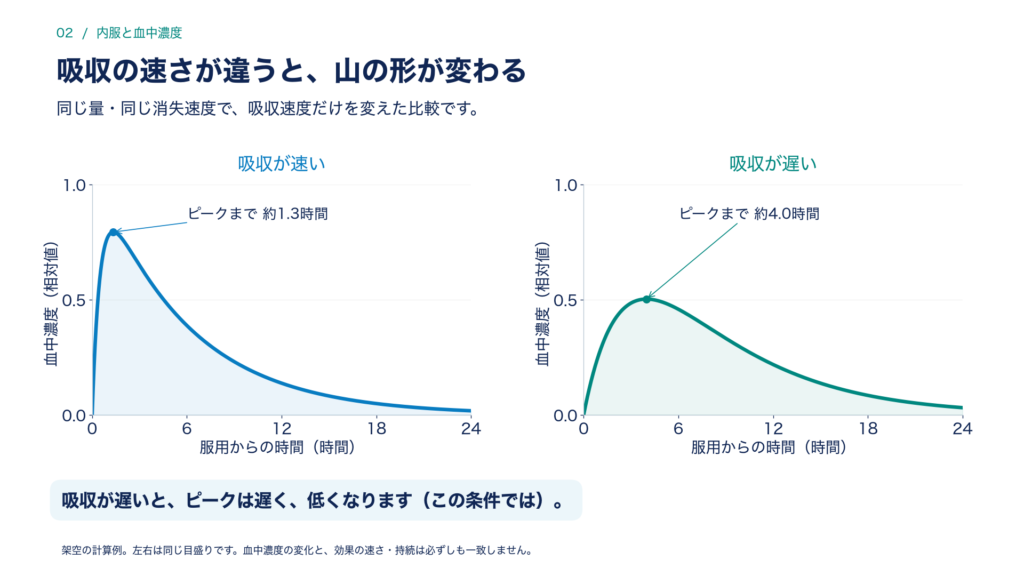
下の図を見て下さい。薬によって吸収の速さが異なり、早いものと遅いものがあります。睡眠薬などで、入眠を早くするタイプなど、吸収が早くないとそうなりません。ゆっくり効きだすタイプもあります。
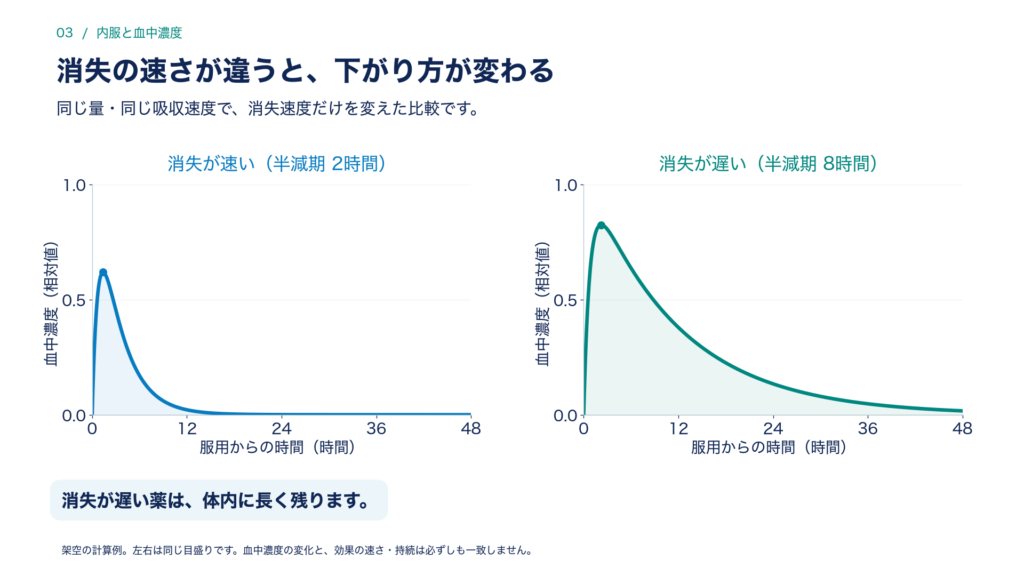
また、消失(代謝されて、出ていく)のスピードも異なります。睡眠薬で、長く寝たい時に用いるタイプの薬は、消失が遅いものです。
5.8.8 半減期 濃度が半分になるまでの時間
「半減期」とは、薬が減っていく過程で、血中濃度が半分になるまでの時間です。ここでは、一定の割合で減る単純な場合を考えます。
たとえば半減期が12時間なら、ある時点の濃度を100とすると、12時間後に50、24時間後に25、36時間後に12.5となります。毎回同じ量が減るのではなく、「その時点の濃度の半分になる」のがポイントです。
これは、追加の投与や吸収の影響を無視できる状態の説明です。実際には複数の段階に分かれて減る薬や、吸収の遅さが見かけの半減期に影響する製剤もあります。
また、半減期は「効果が半分になる時間」でも、「薬が完全になくなる時間」でもありません。半減期だけを見て、服薬回数を決めることもできません。
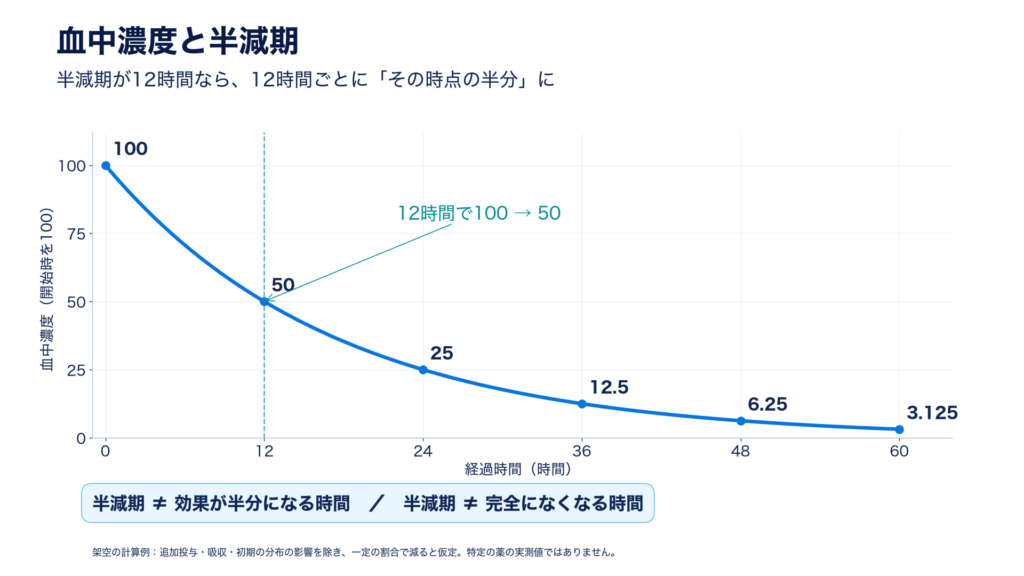
図の説明:半減期12時間とした架空の計算例です。特定の薬の実測値や服薬方法を示すものではありません。
5.8.9 服薬回数 決まった間隔で服用すると、一定の「山と谷」に落ち着く
薬が完全になくなる前に次の薬を飲むと、前の薬の残りに、次の薬が加わります。最初は少しずつ蓄積しますが、同じ量を同じ間隔で続けると、やがて一定期間に入る量と出ていく量が釣り合うようになります。これが「定常状態」です。ここでいう「安定」は、血中濃度が平らな線になるという意味ではありません。飲んだ後に上がり、次の服薬までに下がるという、同じような山と谷を繰り返す状態です。単純な条件では、定常状態に近づくまでの目安は半減期の4~5倍です。ただし、徐放性製剤やデポ剤(後述)、代謝の性質が変わる薬などでは、この目安をそのまま当てはめられないことがあります。定常状態になる時期と、症状が十分に改善する時期も同じではありません。
同じ1日量を分けて飲むと、条件によっては山と谷の幅を小さくできます。一方、長く残る薬や、ゆっくり放出される製剤では、少ない回数で安定した濃度を保てる場合があります。
服薬回数は、多ければよいわけではありません。半減期、吸収の速さ、製剤の工夫、効果・副作用、生活の続けやすさなどを合わせて決めます。
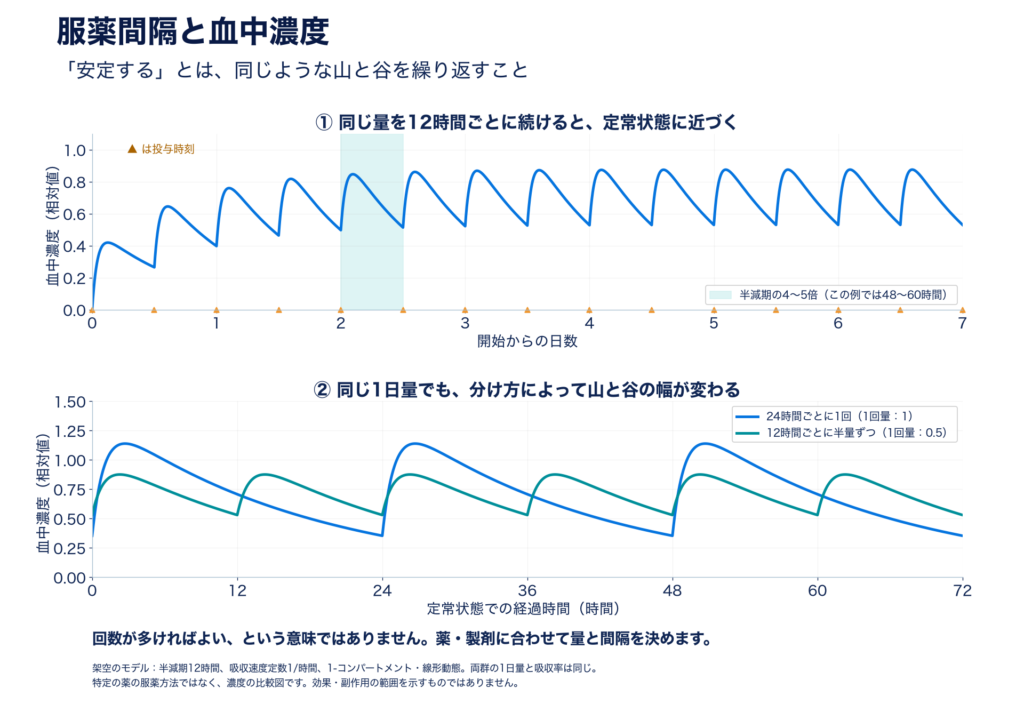
図の説明:半減期12時間の架空の薬を用いたモデルです。上段は反復投与による定常状態への接近、下段は同じ1日量を24時間ごとに1回/12時間ごとに半量ずつ与える場合の比較です。後者が常に適切という意味ではありません。
5.8.10 薬の剤型や投与法
「投与経路」は薬を入れる場所、「剤形」は薬を届けるための形や工夫です。たとえば筋肉注射は投与経路、デポ剤はゆっくり放出する製剤の工夫で、同じ分類ではありません。
以下は投与経路の仕組みを説明するものです。すべての向精神薬に、すべての投与方法が用意されているわけではなく、使用できる製剤や適応は国によっても異なります。
5.8.10.1 徐放製剤
同じ成分の薬でも、普通の錠剤と「徐放錠」が用意されていることがあります。「徐放」は、ゆっくり放出するという意味です。徐放製剤は、有効成分が製剤から出てくる速さや時間を調節し、長い時間をかけて放出されるようにした薬です。普通の製剤では、成分が比較的短い時間に放出され、吸収されます。一方、徐放製剤では、成分を少しずつ放出することで、消化管から体内へ入る時間を長くします。
その結果、同じ成分の通常の製剤に比べて、血中濃度の急な上昇や、繰り返し服用したときの山と谷の幅を抑えられる場合があります。薬の作用を長く保つ、服薬回数を減らす、濃度の急上昇に伴う副作用を軽減する、といったことを目指します。
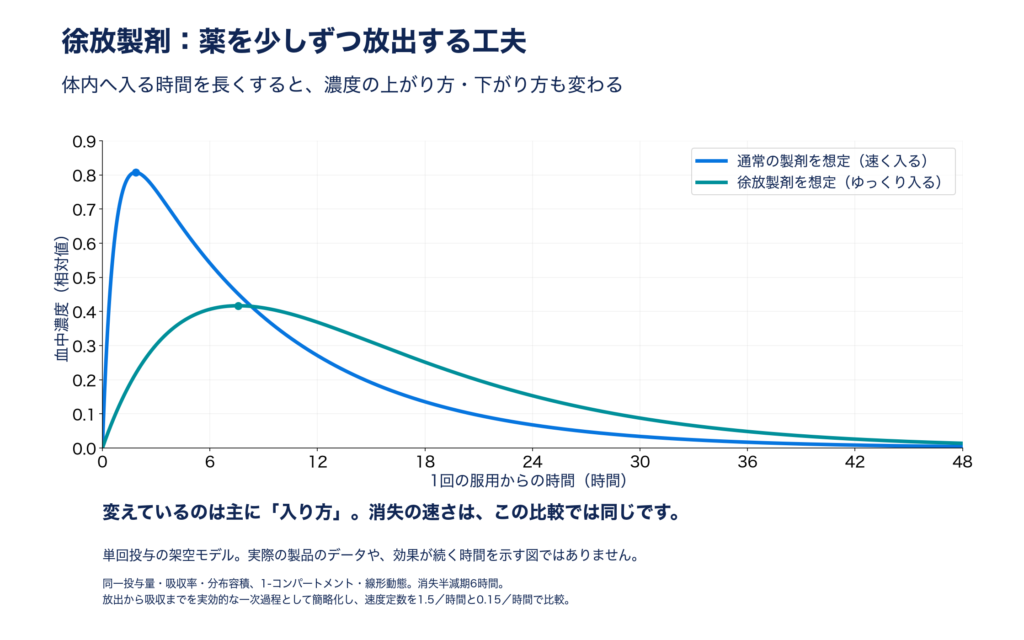
図の説明:同じ量・同じ吸収率を仮定し、1回服用した後の血中濃度を比較した架空のモデルです。徐放によって体内へ入る過程がゆっくりになる様子を示しています。
少しずつ体内に吸収されるようにするメカニズムは、例えば、薬の成分を放出の速度を調節する膜で包んだり、成分をゆっくり外へ出す土台(マトリックス)の中に組み込んだりします。膜と土台を組み合わせた製剤もあります。
精神科でも使われる例が、バルプロ酸ナトリウムの徐放錠であるデパケンR錠です。この製剤は、マトリックスと徐放性の被膜を組み合わせて放出を調節しています。
似たようなもので、腸溶錠、OD錠(口腔内崩壊錠)があります。
腸溶製剤は、胃の中では溶けずに、腸に届いてから溶け出します。胃酸から薬を守ったり、胃への刺激を減らしたりするための工夫で、必ずしも少しずつ放出するわけではありません。OD錠も口の中で崩れて溶けますが、飲み込まれてから消化管で吸収されるので、通常の内服薬と薬物動態は変わりません。水無しで飲めるとか、嚥下が弱い人、薬の飲み込みが苦手な人に有効ですが、成分が口の中で速く吸収されることとは別のことです。
徐放製剤を砕いたり噛んだりすると、放出を調節する構造が壊れ、成分が短時間に出てしまうことがあります。その結果、血中濃度が急に上がったり、予定していた時間だけ作用が続かなかったりするおそれがあります。
自分の判断で割る・砕く・噛む・カプセルを開けることはせず、薬ごとの扱いを医師や薬剤師に確認しましょう。
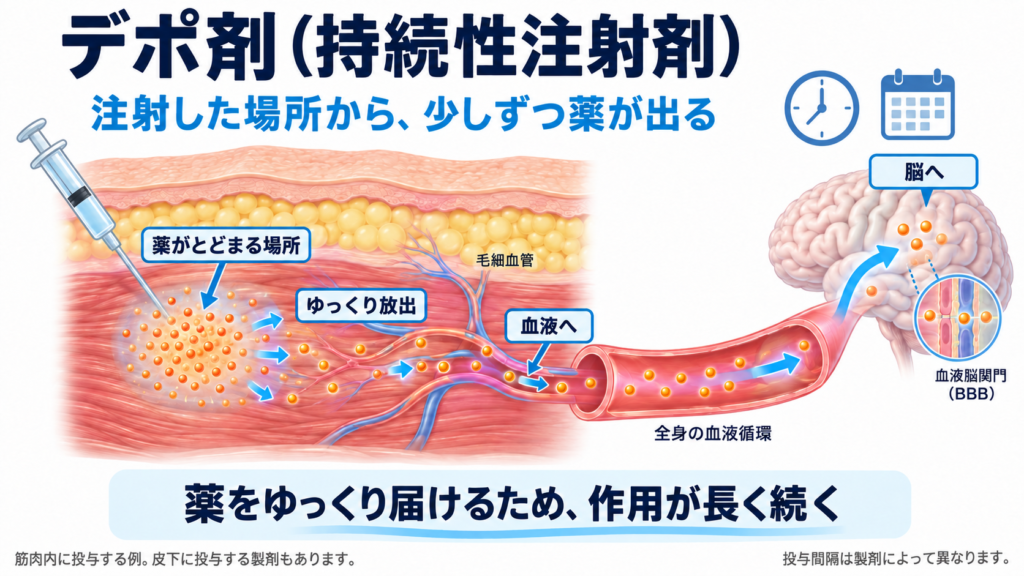
5.8.10.2 デポ剤(持続性注射剤):注射した場所から、少しずつ
デポ剤って聞いたことありますか?例えば「月に1回注射を射てば、薬は飲まなくてよい」などと言われている薬です。デポ剤は、注射した場所から薬がゆっくり溶け出したり、放出されたりするよう工夫した製剤です。長時間作用型注射剤(LAI)として、抗精神病薬などで使われます。筋肉内に投与する製剤のほか、海外には皮下投与の製剤もあります。筋肉内に投与された薬剤は、ゆっくり分解され、体内循環に入っていきます。そのため、効果が1ヶ月くらい持続するのです(薬によって効果期間は異なります)。実際には、睡眠薬や、副作用止めなど、内服も必要になることが多いです。
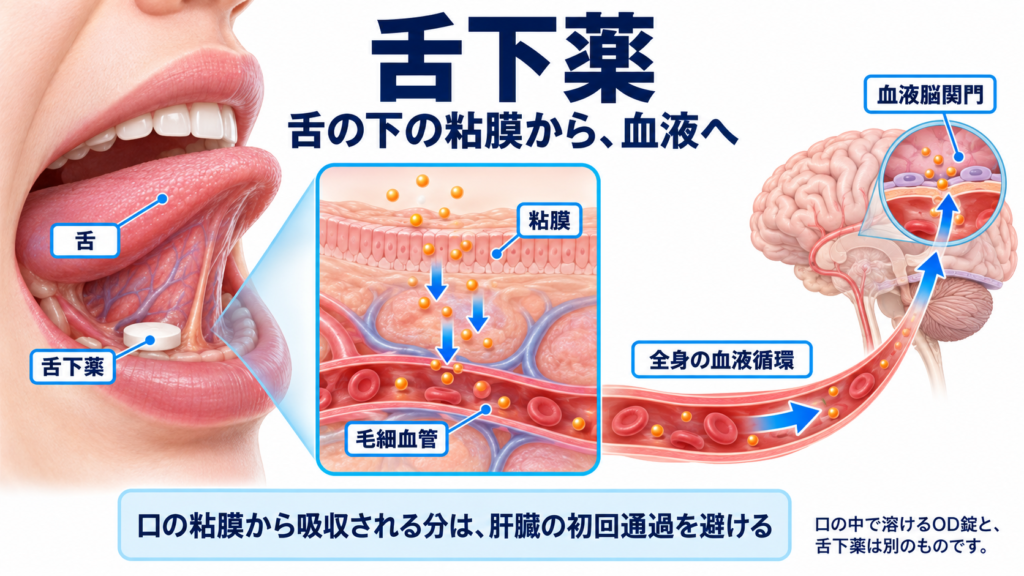
5.8.10.3 舌下薬:舌の下の粘膜から
舌の下で溶かし、口の粘膜から吸収させる薬です。口の粘膜から吸収された分は、消化管・肝臓を経る経路を通らずに直接に全身の血液循環へ入るため、肝臓の初回通過効果を避けられます(肝臓は薬物を分解、代謝する臓器でした)。ただし、循環した後は肝臓にも届きます。飲み込まれた分は、消化管の経路へ回ります。
向精神薬では、アセナピンの舌下錠が例です。口の中で溶ける「OD錠」は、通常、唾液とともに飲み込んで消化管から吸収されるため、舌下薬とは区別します。
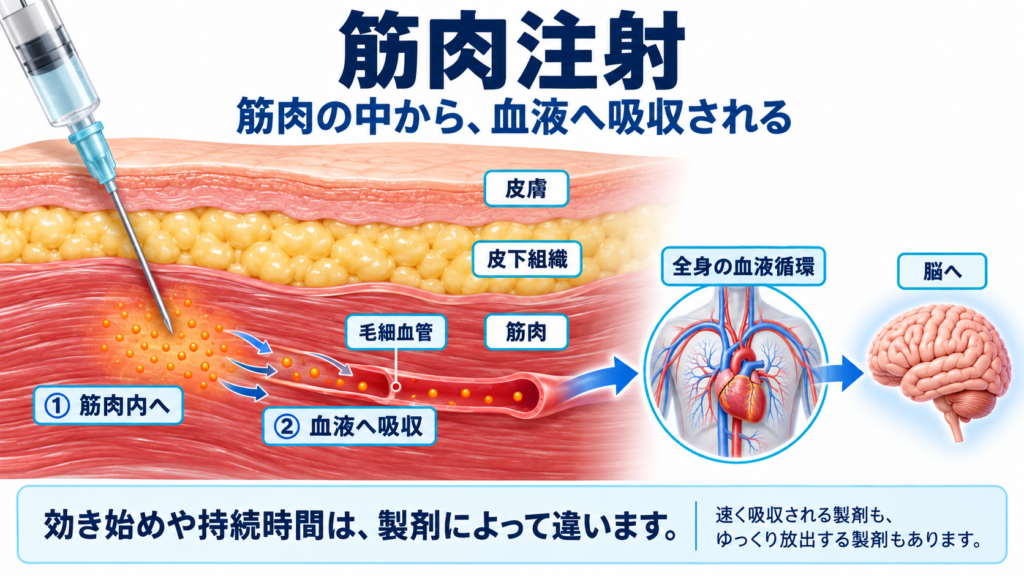
5.8.10.4 筋肉注射:筋肉の中から吸収
筋肉内に薬を入れ、そこから血液へ吸収させます。静脈注射とは異なり、血管の中へ直接入れるわけではありません。
比較的速く吸収される製剤もあれば、デポ剤のようにゆっくり吸収されるものもあります。「筋肉注射ならすべて長持ち」「すべてすぐ効く」ということではありません。
5.8.10.5 皮下注射:皮膚の下の組織から吸収
皮膚と筋肉の間にある皮下組織に薬を入れ、そこから血液へ吸収させます。吸収の速さや作用の持続時間は、薬・製剤・血流などによって変わります。薬によっては、リンパを通って循環へ入る経路も関わります。
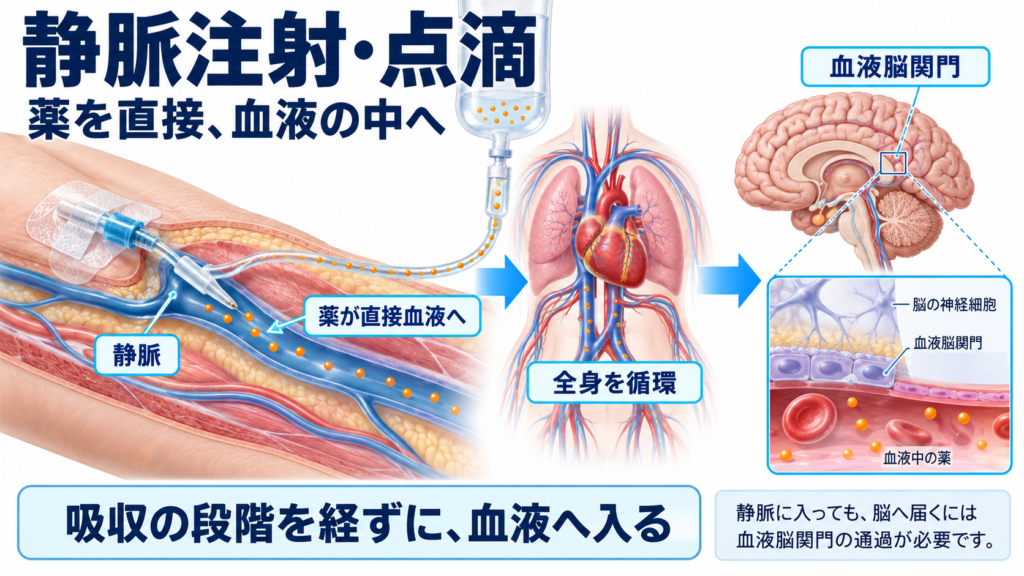
5.8.10.6静脈注射・点滴:血液へ直接
静脈に薬を入れるため、吸収の段階を経ずに血液へ届きます。薬を直接循環へ入れるという意味では、バイオアベイラビリティは100%(投薬した薬が全部血液循環に入るという意味)です。ただし、「100%が脳へ届く」という意味ではありません。
その後は全身へ分布し、脳で働くには血液脳関門の通過が必要です。点滴でゆっくり入れる場合は、投与速度も血中濃度に影響します。
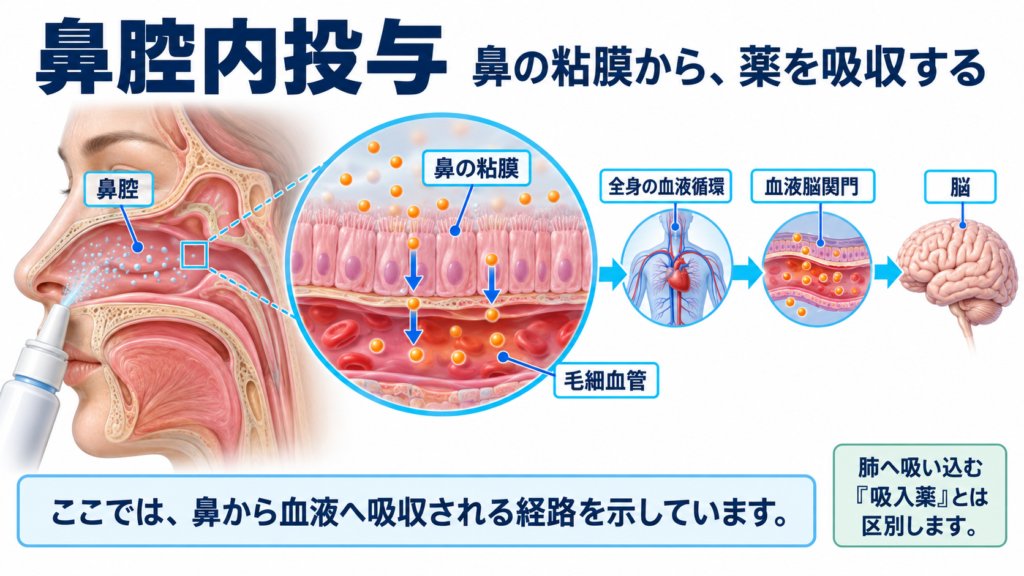
5.8.10.7 鼻腔内投与:鼻の粘膜から
薬を鼻の中に噴霧し、鼻の粘膜から吸収させる方法です。ここでは、鼻の粘膜から血液へ入り、全身を循環して作用部位へ届く経路を説明します。海外で用いられるエスケタミン点鼻薬などが例です。
肺へ吸い込んで吸収させる「吸入薬」とは別です。また、鼻から入れた薬が、すべて脳へ直行するわけでもありません。鼻から脳への直接的な移行が研究される場合もありますが、鼻腔内投与の薬すべてをその仕組みだけで説明することはできません。
5.8.10.8貼付剤:皮膚を通して、少しずつ
皮膚に貼り、薬を少しずつ吸収させる方法です。薬は皮膚の一番外側にある「角層」などを通り、その下の毛細血管へ入ります。全身に作用する経皮吸収型の製剤では、貼った場所から離れた脳などにも薬が届きます。
向精神薬では、ブロナンセリンのテープ剤が例です。消化管から吸収される場合の初回通過を避けられますが、体内へ入った後は代謝・排泄を受けます。濃度変動を抑えやすい製剤もありますが、血中濃度が完全に一定になるわけではありません。
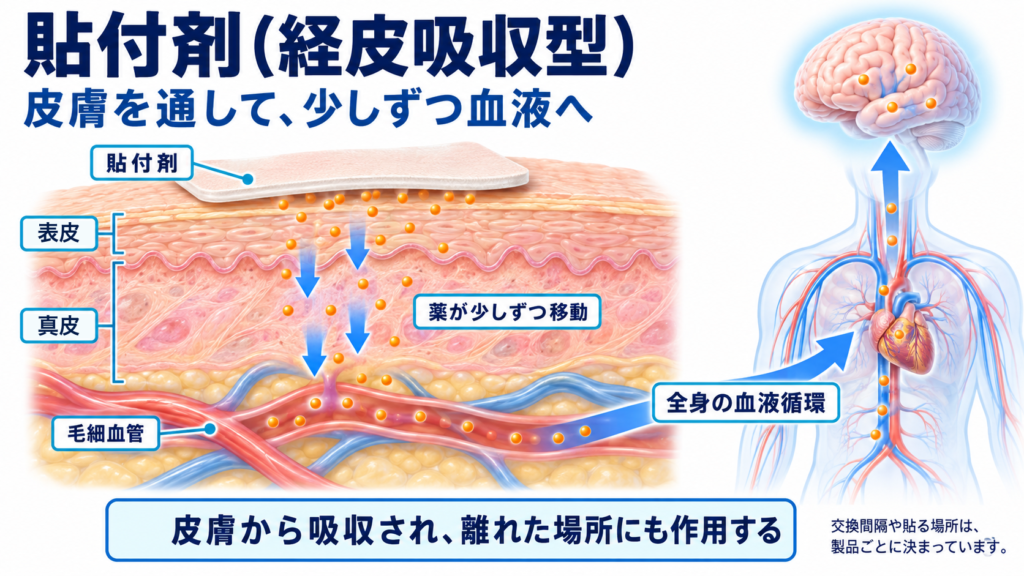
同じ量の薬でも、体への入り方や、肝臓・腎臓の働き、年齢、体質、併用薬などによって、血中濃度は変わります。
薬を選ぶときには、受容体への作用だけでなく、どのくらいの速さで入り、どこへ届き、どのくらいの速さで減っていくかも考えます。処方された量と間隔を守ることは、こうした体内の動きを見込んだ治療を続けるために大切です。量や回数を変えたいときは、処方医や薬剤師と相談しましょう。
5.9 電気・磁気の神経細胞への作用
精神科の治療には、薬や心理療法のほかに、電気や磁気を使う方法があります。さらに、対象はごく限られますが、手術によって神経回路に働きかける治療もあります。
「こころの病気に電気?」と不思議に思うかもしれません。しかし、私たちが考えたり、感じたり、行動したりするときには、脳の神経細胞どうしが情報をやり取りしています。その仕組みには、電気と化学物質の両方が関わっています。
まず電気と磁気の関係を見てから、精神科でどのように応用されているかをたどります。日本の診療で用いられる治療と、海外の限られた施設で行われる治療、研究段階の治療を分けて説明します。
5.9.1.脳は、電気と化学物質で情報を伝えている
神経細胞の膜をイオンが出入りすると、膜の内外の電圧が変化します。この変化が神経線維を伝わり、シナプスでは神経伝達物質を介して、次の細胞へ情報が渡されます。
薬は受容体や伝達物質の働きなどに作用します。一方、電気や磁気による治療では、神経細胞の電気的な活動に外から働きかけます。その結果、つながっている神経回路にも変化が及びます。
5.9.2.電流を流すと、磁場ができる
電線に電流を流すと、その周りに磁場ができます。磁場とは、磁石などに力が働く空間の性質です。
電線をぐるぐる巻いたものが「コイル」です。コイルに電流を流すと、それぞれの巻き線がつくる磁場が重なり、電磁石として働きます。電流を変えれば、磁場も変わります。
5.9.3.ファラデーの法則――大切なのは「変化すること」
磁石の間でコイルを回すと、コイルの輪を貫く磁場の量が変わります。この量を「磁束」といいます。「磁束が変化すると、コイルに電圧が生じます」これが、ファラデーの電磁誘導の法則です。回路が閉じていれば、その電圧によって電流が流れます。
ここで重要なのは、単に磁場の中にコイルを置くだけでは、電流が流れ続けるわけではないことです。コイルを回す、磁石を近づける・遠ざける、磁場そのものの強さを変えるなどして、磁束を変化させる必要があります。回転させる場合も、磁束が変わる向きに回すことが条件です。
発電機では、回転によって磁束を変えます。一方、あとで説明するTMSでは、「コイルは頭の外に固定したまま、コイルに流す電流を急速に変えます」それによって変化する磁場をつくり、脳の中に電場を生じさせるのです。脳内に金属のコイルを入れる必要はありません。
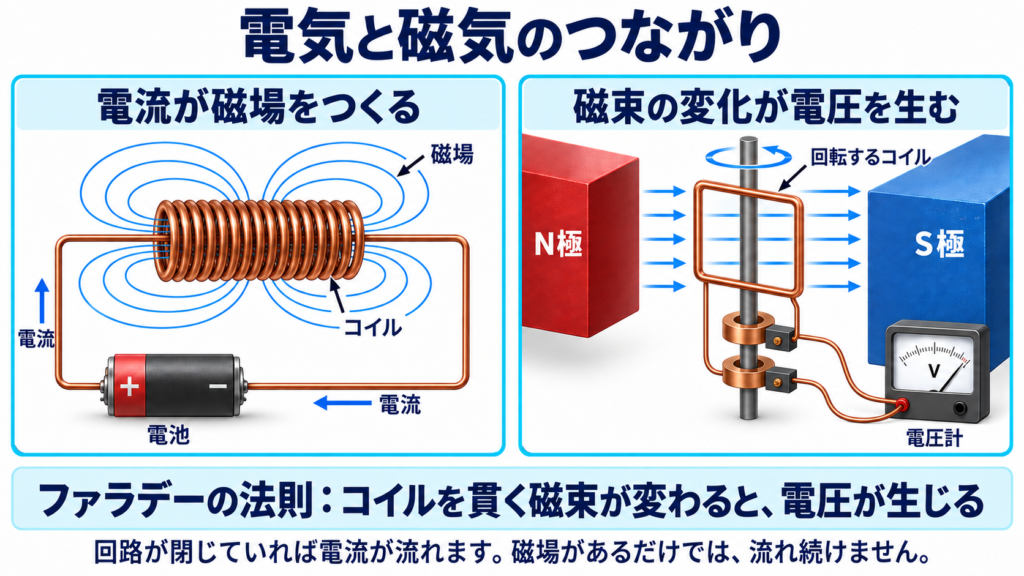
図の説明:左は電流から磁場をつくる電磁石、右は磁場の中でコイルを回す発電の模式図です。右では、磁場と回転軸が直角になる配置にしています。機械の細部は簡略化しています。
### もう一歩:式で表すと
誘導される電圧は、「ε = -N × dΦ/dt*」と表せます。Nはコイルの巻き数、Φは1巻きを貫く磁束です。「磁束が速く変わるほど、また巻き数が多いほど、大きな電圧が生じる」という意味です。マイナスの符号は、生じる電流が磁束の変化を妨げる向きになることを表します。
5.9.4.ECT――電気刺激で、脳に短い発作活動を起こす
ECTは「電気けいれん療法」の略です。頭皮に置いた電極から短い電気刺激を与え、脳に一時的な発作活動を起こします。脳の中に電極を埋め込む手術ではありません。
この発作活動をきっかけに、神経回路の働きや神経伝達などが変化し、症状の改善につながると考えられています。ただし、なぜ効果が生じるのかは、まだすべて解明されているわけではありません。「脳をリセットする」という表現はたとえであり、記憶や人格を初期化するという意味ではありません。
ECTは、重いうつ状態、双極症の重いうつ状態や躁状態、緊張病、一部の統合失調症などで検討されます。緊張病とは、動けない、話せない、同じ姿勢を続ける、ときには激しく興奮するなど、動きや反応に大きな異常が現れる状態です。
薬などで十分な改善が得られないときだけでなく、食事や水分がとれないなど、早い改善が必要な場面で選択されることもあります。病名だけで自動的に決まるのではなく、重症度、身体の状態、これまでの治療、本人の意向、予想される利益とリスクを合わせて判断します。
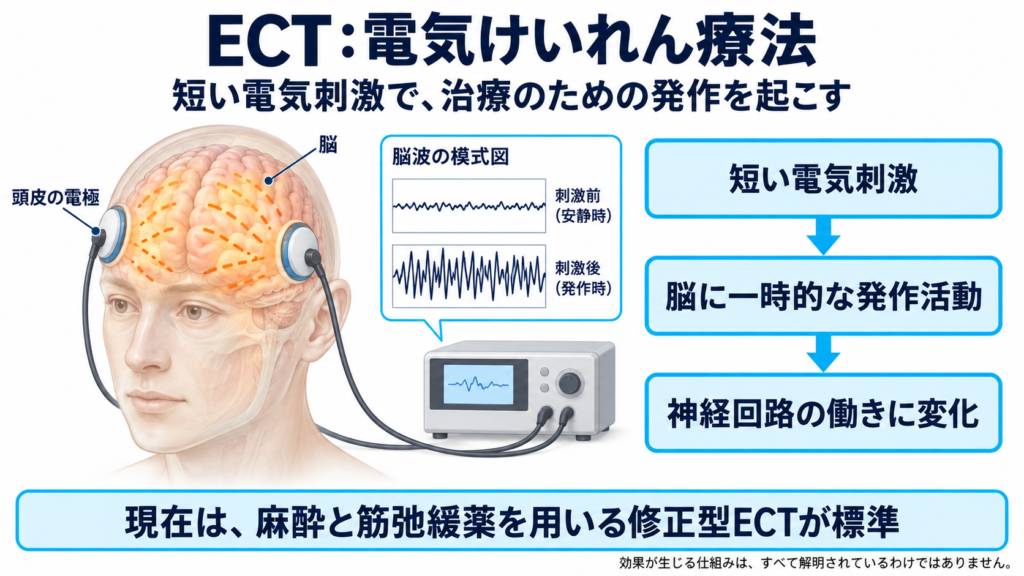
図の説明:電極は頭皮に置きます。頭部と脳波は仕組みを説明する模式図で、覚醒したままの治療を勧めるものではありません。左右に電極を置く例を描いていますが、配置には複数の方法があります。
5.9.5.修正型ECT――麻酔と筋弛緩薬を組み合わせる
修正型ECT(mECT)は、ECTとは別の原理の治療ではありません。「全身麻酔と筋弛緩薬を用いて行うECT」のことです。現在の標準的な方法です。
全身麻酔で眠っている間に治療し、筋弛緩薬で体の大きなけいれんを抑えます。呼吸を補助し、脳波、心電図、血圧、血液中の酸素の状態などを確認しながら行います。
大切なのは、「体が大きくけいれんしないこと」と「脳に発作活動が起きないこと」は別だという点です。筋弛緩薬は主に体の動きを抑えますが、脳では治療に必要な発作活動が起こります。
昔は麻酔や筋弛緩薬を使わない非修正型ECTも行われ、骨折などの身体的な問題がありました。修正型ECTは、こうした危険を減らすための工夫です。
ただし、副作用がなくなるわけではありません。頭痛、吐き気、治療直後の混乱、記憶への影響などがあります。記憶の問題は改善することが多い一方、治療前後の出来事など、一部の記憶が戻りにくい場合もあります。麻酔や循環への影響も含めて評価します。通常は複数回の治療を行い、改善後も薬や継続・維持ECTなどで再発を防ぐことがあります。
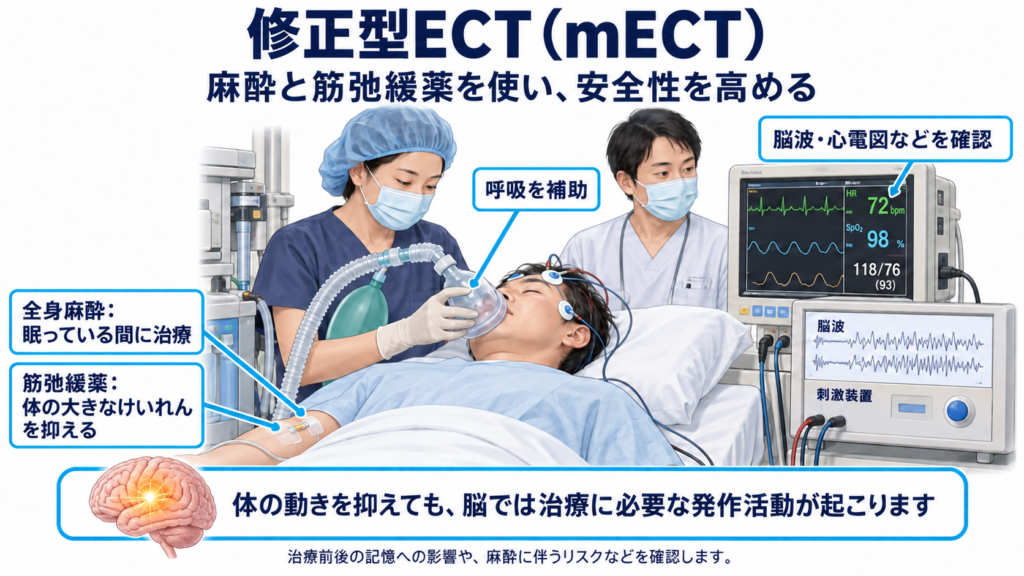
図の説明:麻酔、筋弛緩、呼吸の補助、モニタリングを組み合わせます。「修正」は電気を弱くするだけの意味ではありません。
5.9.6.TMS――頭の外のコイルから、脳を刺激する
TMSは「経頭蓋磁気刺激」です。「経頭蓋」は、頭蓋骨を越えて働きかけるという意味です。
頭皮の近くにコイルを置き、そこに短い電流を流します。電流が急速に変わると磁場も変化し、ファラデーの法則に従って、脳内に電場が生じます。脳の組織ではイオンが動いて電流が流れ、神経細胞の活動に影響します。
つまり、TMSも最終的には神経細胞の電気的な活動に働きかけます。頭皮の電極から電流を送り込むECTと、頭の外のコイルで電磁誘導を起こすTMSでは、刺激の届け方が異なります。
一般的なコイルでは、まず脳の表面に近い大脳皮質が刺激され、その場所とつながる回路にも影響が及びます。コイルの種類、位置、向きによって、刺激が届く範囲は変わります。磁石を頭に当てておくだけで、同じ治療になるわけではありません。
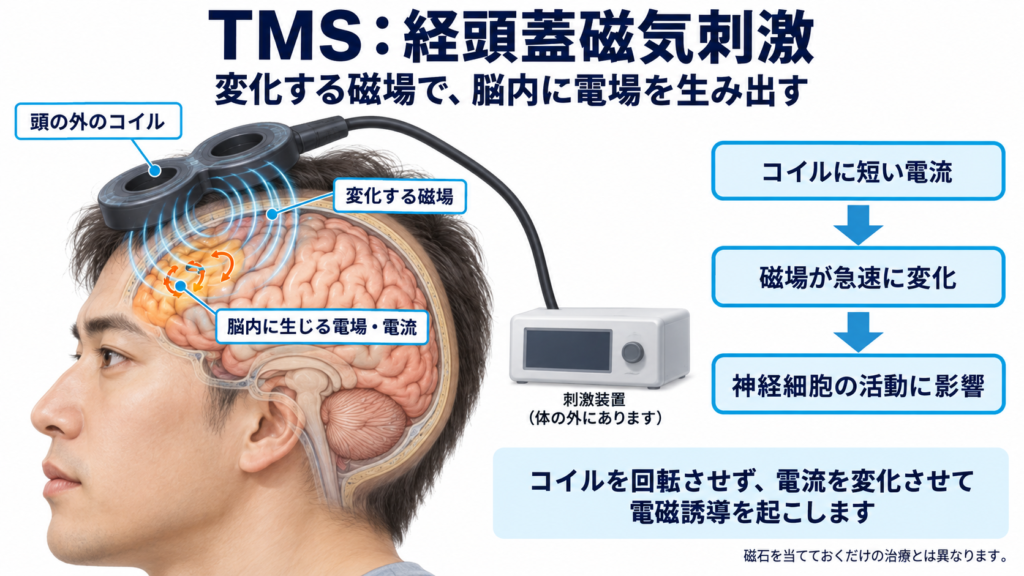
図の説明:コイルは頭の外に置きます。青は変化する磁場、オレンジは脳内の電場・電流の模式表現です。皮膚や頭蓋骨を切る必要はありません。
rTMSの「r」は、repetitive、つまり「繰り返す」という意味です。TMSという技術のうち、刺激を一定のパターンで繰り返す方法を指します。
5.9.7.rTMS――磁気刺激を繰り返して、回路の働きに変化を促す
TMSには、1回ずつ刺激して神経の反応を調べる使い方もあります。治療では、rTMSによって刺激を重ね、刺激が終わった後にも続く神経回路の変化を目指します。刺激の速さや並べ方で効果が変わり、短い刺激のまとまりを繰り返す「シータバースト刺激」も、その一種です。
うつ病では、考えを整理したり感情を調整したりするネットワークに関わる前頭前野などが標的になります。「うつ病の場所が一点だけある」という意味ではなく、その場所を入口に、つながった回路へ働きかけると考えます。
通常は全身麻酔を使わず、起きたまま受けます。刺激音から耳を守るために耳栓などを使います。頭皮の痛みや頭痛、顔の筋肉がぴくつく感じなどがあり、まれに発作が起こることもありますが、標準的なrTMSは、ECTのように発作を起こすことを目的としません。
日本では、薬物療法で十分な効果が得られないうつ病など、条件を満たす場合に保険診療で行われています。海外には強迫症などを対象とする機器もありますが、国や装置によって承認内容が異なります。
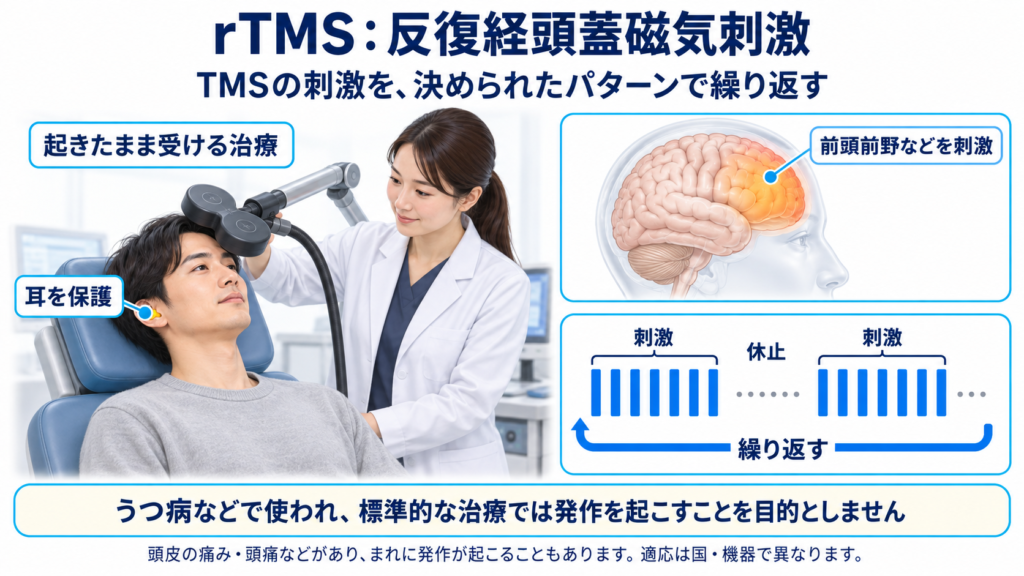
図の説明:刺激と休止を繰り返すパターンの一例です。実際のパターンや治療期間は、装置・治療方法・患者さんの状態で異なります。
5.9.8.DBS――脳内に電極を埋め込み、刺激を調整する
DBSは「脳深部刺激療法」です。手術で脳内の狙った場所に細い電極を置き、皮膚の下を通るリード線で、胸などに埋め込んだ刺激装置とつなぎます。装置から電気刺激を送り、回路の活動を調整します。
この方法は、パーキンソン病などの神経疾患で使われてきました。精神疾患では、特に、薬や認知行動療法などを十分に行っても重い症状が続く「治療抵抗性の強迫症」で検討されています。
強迫症では、内包前脚の腹側部など、前頭前野と脳の深部を結ぶ回路が標的の一例になります。「深部」という名前ですが、どの病気でも同じ場所に電極を入れるわけではありません。
米国では、重い治療抵抗性の強迫症に対する機器が、HDEという限られた制度の下で認められています。一般的な承認と同じ強さの有効性の証明を意味する制度ではありません。英国NICEは、強迫症へのDBSを研究の中で行うよう勧告しており、海外でも位置づけは一様ではありません。うつ病へのDBSは主に研究段階です。
DBSは刺激を調整したり止めたりできますが、「完全に元へ戻せて、危険もない」という意味ではありません。電極を入れる手術には出血や感染などのリスクがあり、機器の管理や継続的な調整も必要です。
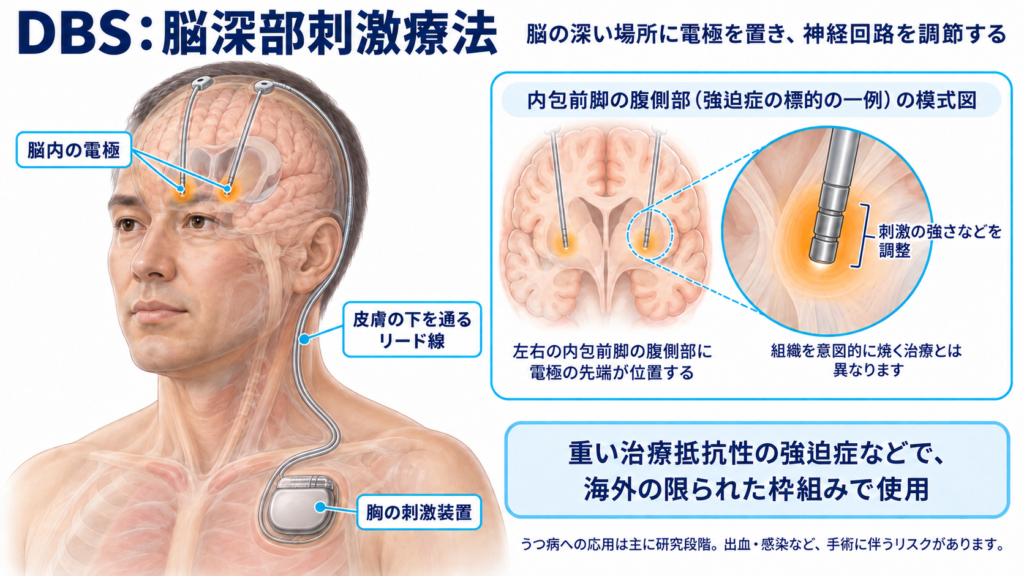
図の説明:脳内の電極、皮膚の下のリード線、胸の刺激装置を描いています。強迫症の標的の一例を示した模式図で、手術位置を決める画像ではありません。
5.9.9.VNS――首の迷走神経を通じて、脳へ働きかける
電極を埋め込む治療でも、脳に電極を入れない方法があります。それが「迷走神経刺激療法(VNS)」です。
迷走神経は、脳幹から首を通って胸やお腹へ伸び、体の状態と脳を結びつける神経です。植込み型VNSでは、通常、左の首の迷走神経に電極を巻き、胸の皮膚の下に置いた装置から刺激を送ります。その信号が脳幹を介して脳のネットワークに影響します。
VNSはてんかんの治療として発展しました。米国では、複数の抗うつ治療で十分な改善が得られない成人の慢性・反復性うつ病に、補助的な長期治療として承認されています。効果が現れるまで時間がかかることがあり、すべての人に効くわけではありません。声のかすれ、咳、息苦しさなどや、手術に伴う問題が起こることがあります。
ここで説明しているのは植込み型です。皮膚の上から耳や首を刺激する方法は、同じ名称で語られることがあっても別の機器・方法です。米国のうつ病への承認を、そのまま日本の適応や、皮膚から刺激する製品の効果に当てはめることはできません。
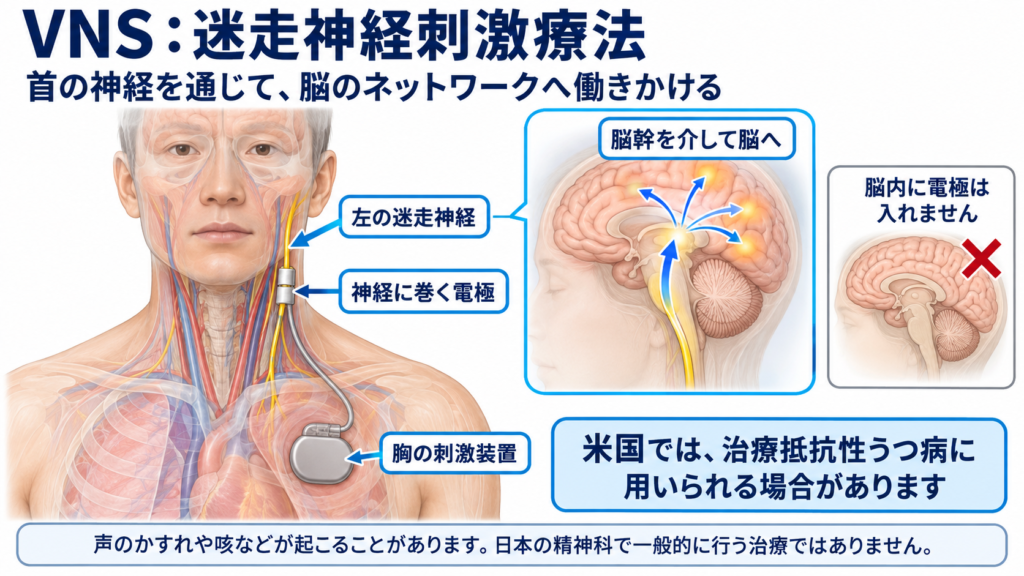
図の説明:電極を巻く場所は首の左迷走神経です。正面図では、本人の左側は見る人の右側になります。脳内には電極を入れません。
5.10遺伝の問題
遺伝の問題は、精神疾患と関わっていくにあたってどのように考えたら良いのでしょうか?切実な問題ですよね。過度に悲観的に考えないためにも、現在分かっている範囲で、遺伝のメカニズムを理解しておく方が良いと考え、簡単に以下に整理してみます。次の章で治療における遺伝に関する私の考えを述べるつもりです。
5.10.1 遺伝子・染色体・DNA
「遺伝子」とは、厳密に考えると専門家でも定義が難しいことですが、一般的な理解を以下に述べます。
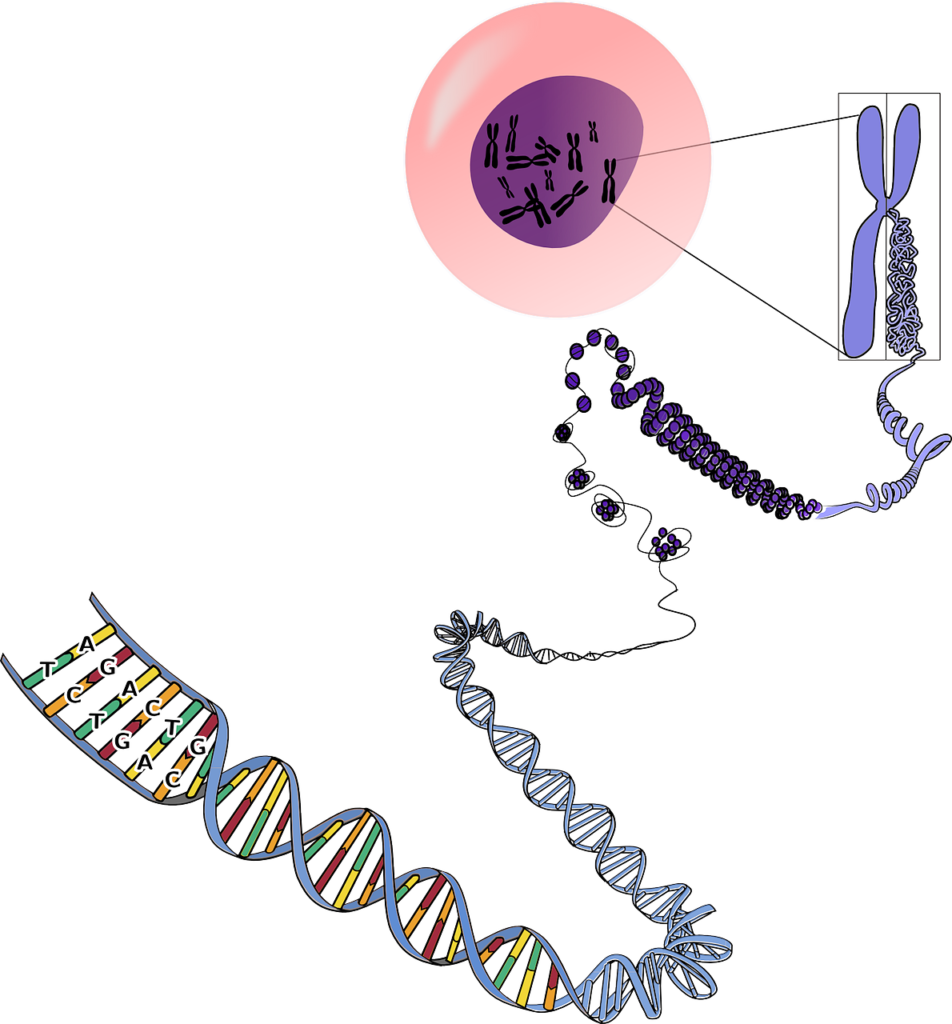
細胞の中には核があり、その中に染色体があります(下の図を見て下さい)。染色体は、長いDNAと、それをまとめるヒストンなどのタンパク質からできています。DNAのうち、特定のRNAやタンパク質を作る情報をもつ領域を「遺伝子」と呼びます。遺伝子は、DNAとは別の物質が中に入っているわけではありません。
DNAの情報を本にたとえるなら、遺伝子はその中の意味のある一節のようなものです。ただし、DNAには遺伝子の働き方を調節する領域などもあり、すべての部分がタンパク質の設計図になっているわけではありません。
DNAは、2本の鎖が組になった「二重らせん」を作っています。この2本は、父親からの1本と母親からの1本という意味ではなく、父母から受け継ぐ染色体のそれぞれに、二重らせんのDNAがあります。
なお、DNAは核だけでなく、ミトコンドリアにもあります。以降は、核のDNAを中心に話を進めます。
5.10.2 DNA・・・情報を記録する4種類の塩基
DNAの構造を見ていきましょう。DNAは「デオキシリボ核酸」の略です。基本の材料は、「糖」「リン酸」「塩基」を組み合わせたヌクレオチドです。DNAで使われる糖は、デオキシリボースと言います。以下の図を見て下さい。炭素(C)の位置が分かるように数字がうってあります。1’、2’・・などで示しています。
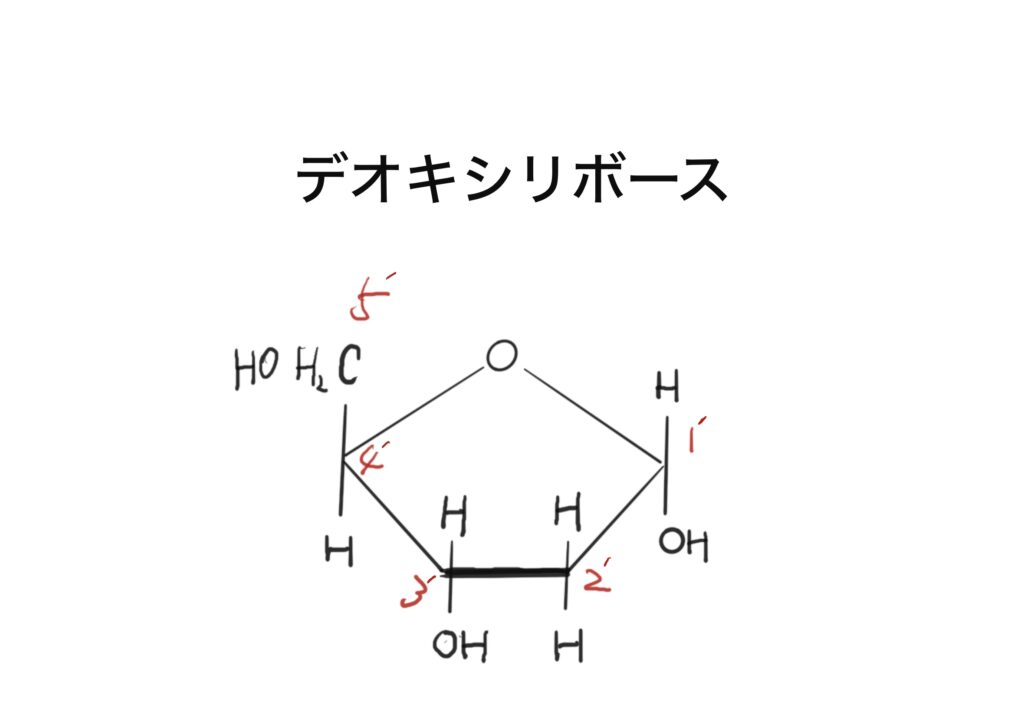
そしてこのデオキシリボースに一つ塩基と呼ばれるものがつきます。上の図で、赤い数字が打ってありますが、炭素(C)の位置を示すための番号です。1’の位置に「塩基」と呼ばれるものがつきます。
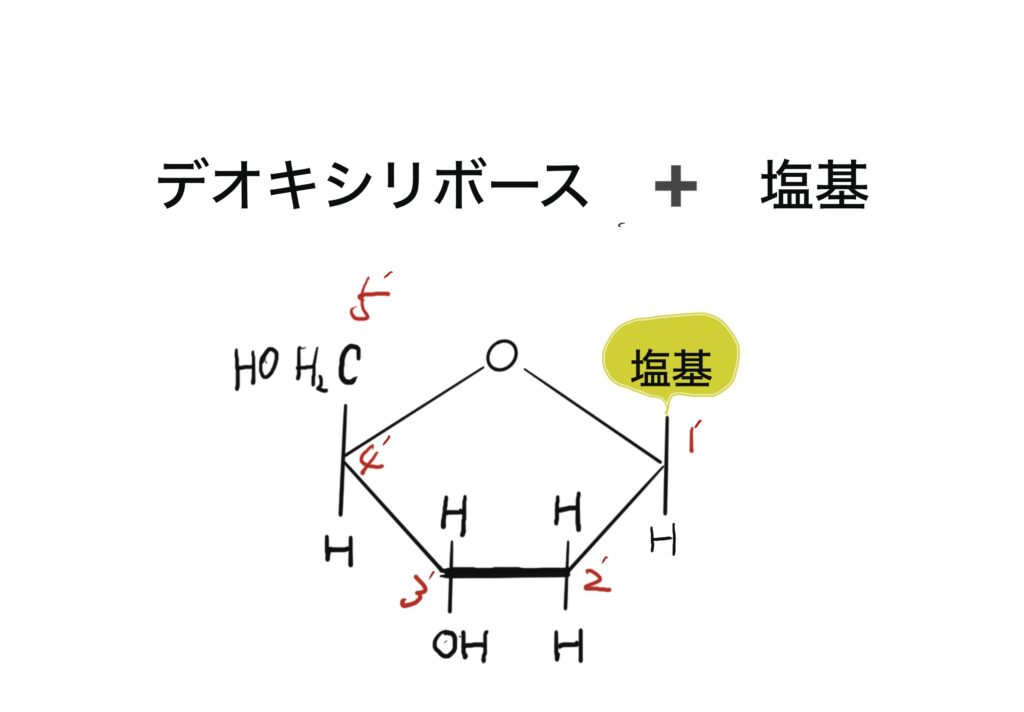
そして、その塩基は4種類あり、アデニン、チミン、グアニン、シトシンです。

そして、炭素の番号3’の位置と、5’の位置で、隣り合うデオキシリボースがリン酸を間に挟んで繋がっていきます。
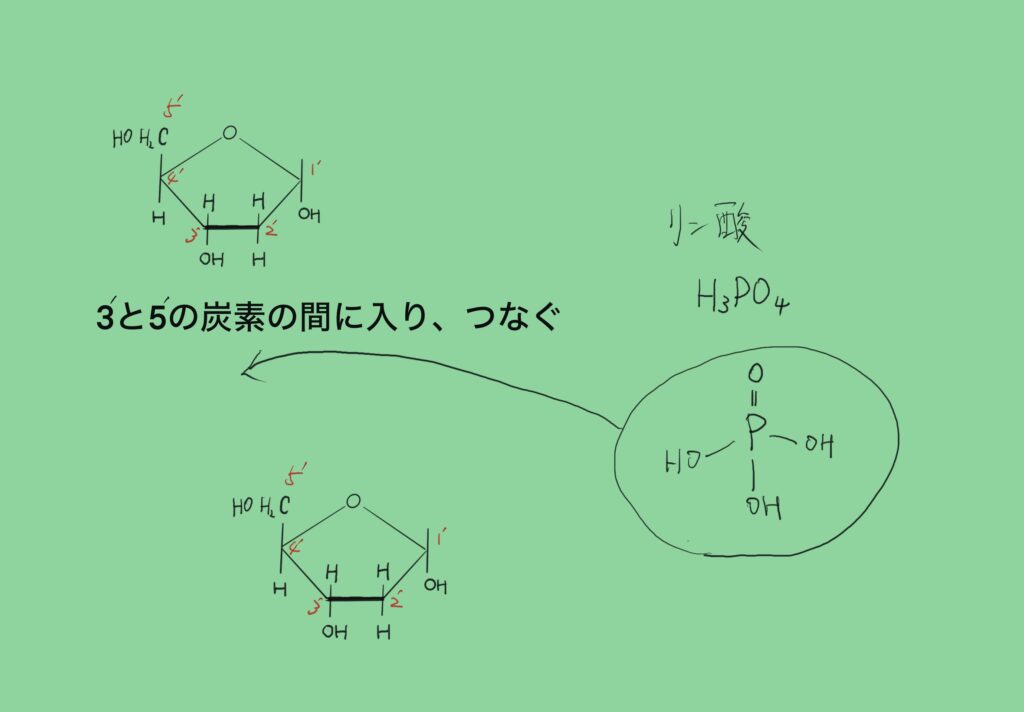
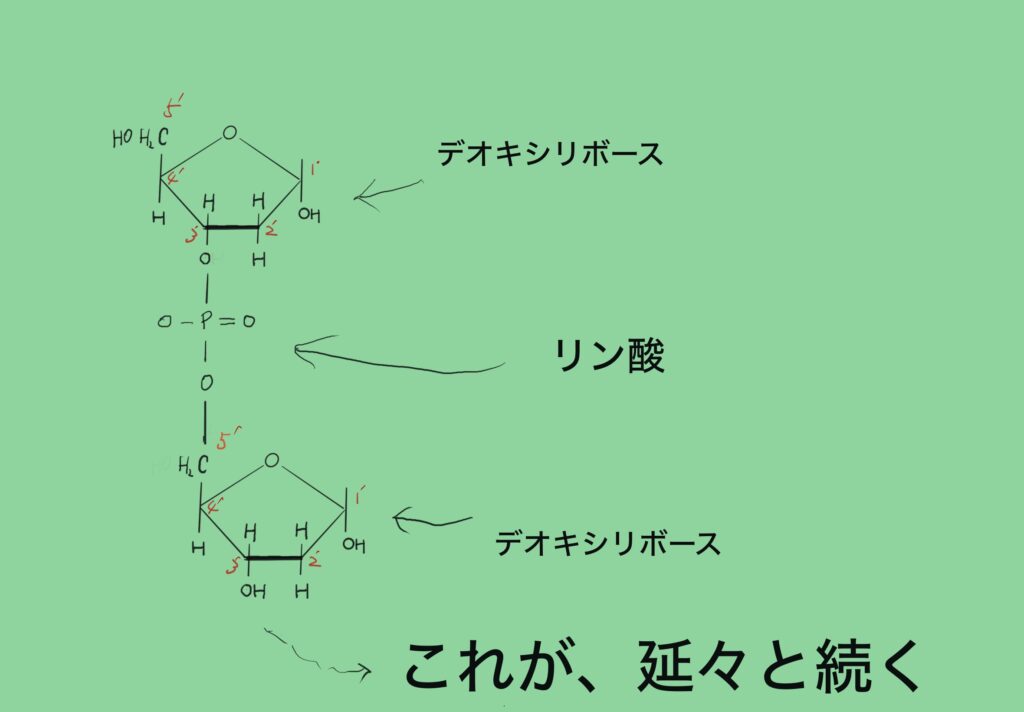
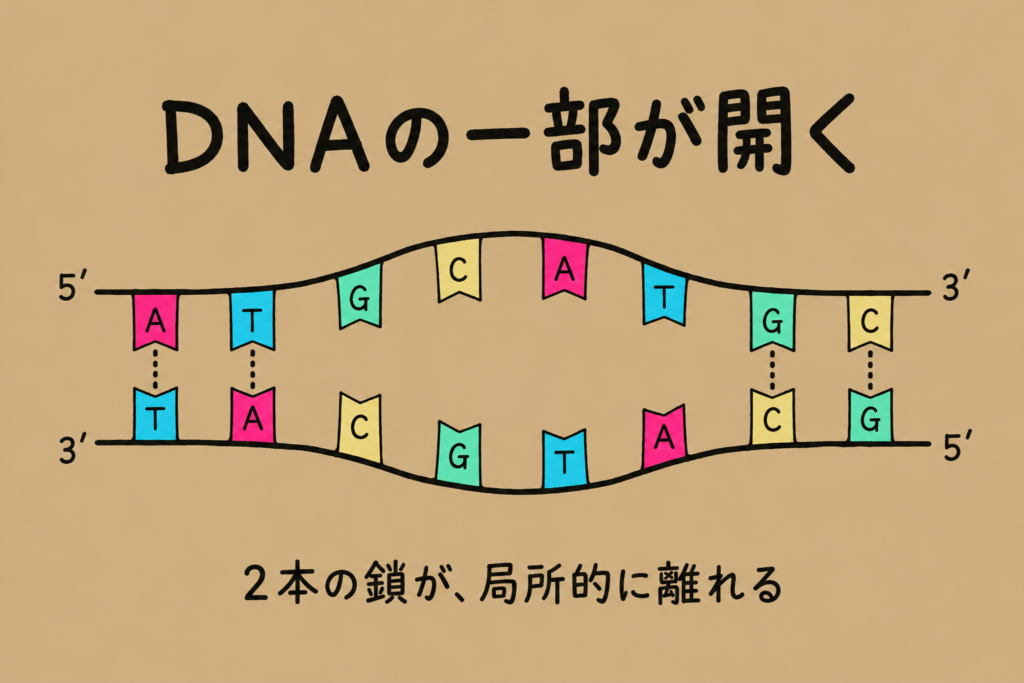
炭素番号1’の位置に4種類の塩基がつきます。この構造が延々と繰り返された長い鎖がDNAなのですが、2本で螺旋状になって存在します。その際に塩基が決まったペアを組む性質が知られています。アデニン(A)にはチミン(T)、シトシン(C)にはグアニン(G)でペアを組みます。以下に模式図を示します。
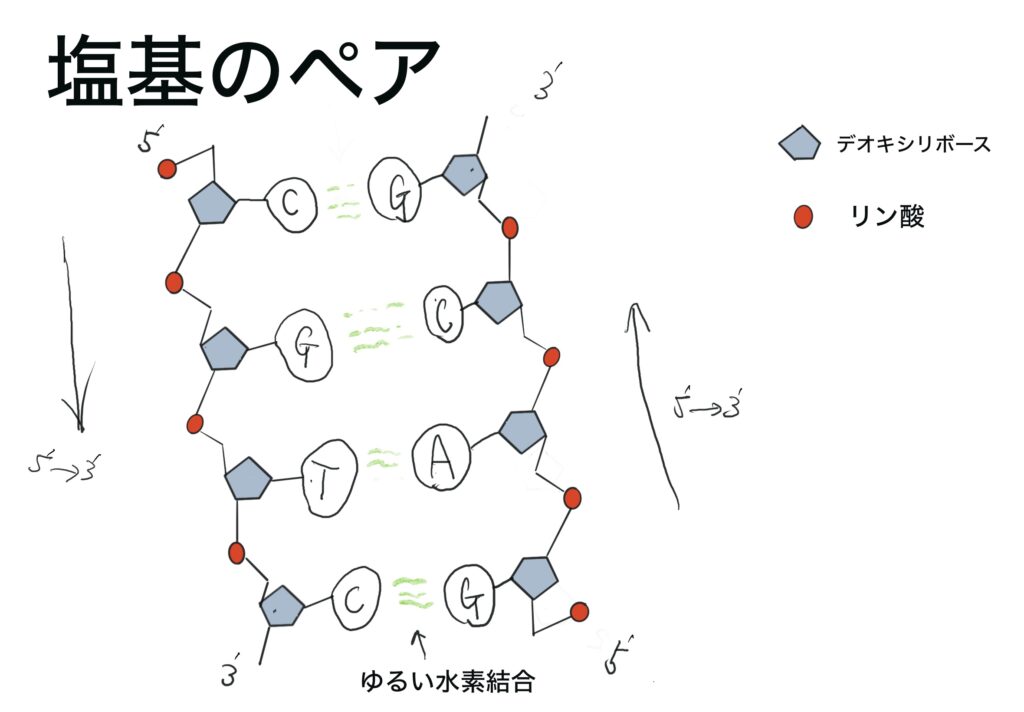
これがDNAの二重螺旋構造です。
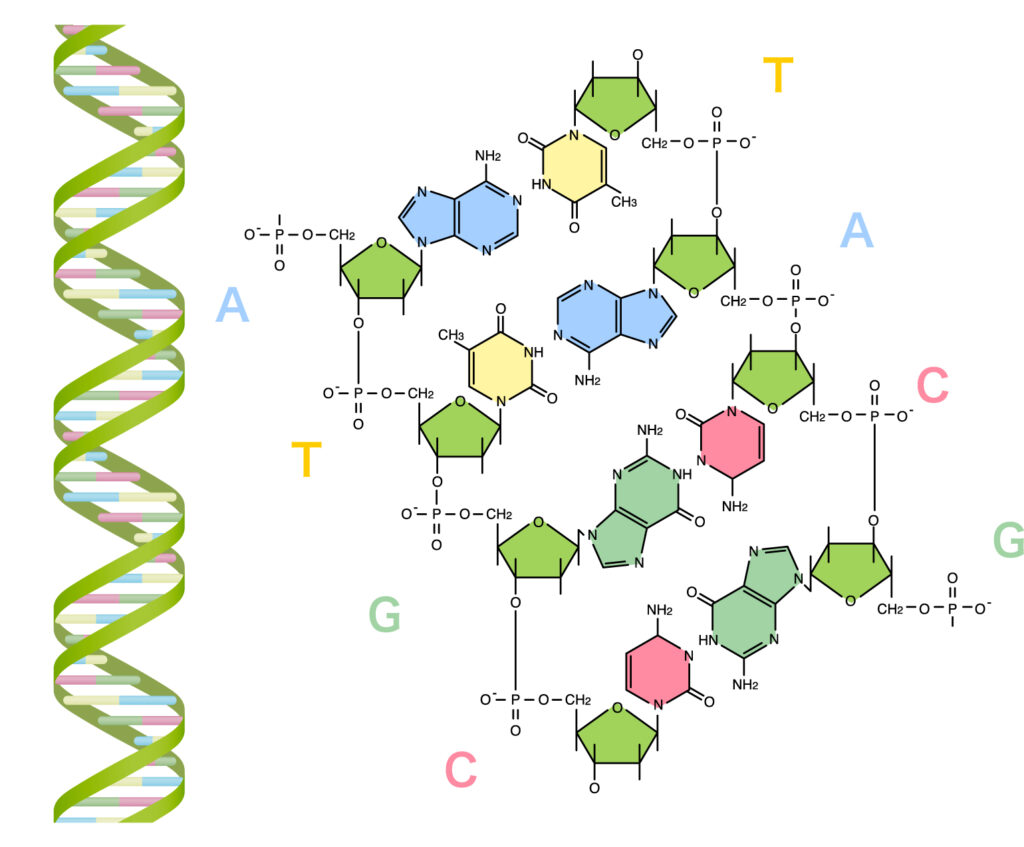
5.10.3 RNA
次にRNAの話をします。RNAは「リボ核酸」の略です。DNAと似た構造をしています。基盤となる糖が、デオキシリボースではなくて、リボースになります。そしてDNAと違って、通常一本鎖で存在します(折りたたまれたりするので、ひもの状態とは限りません)。
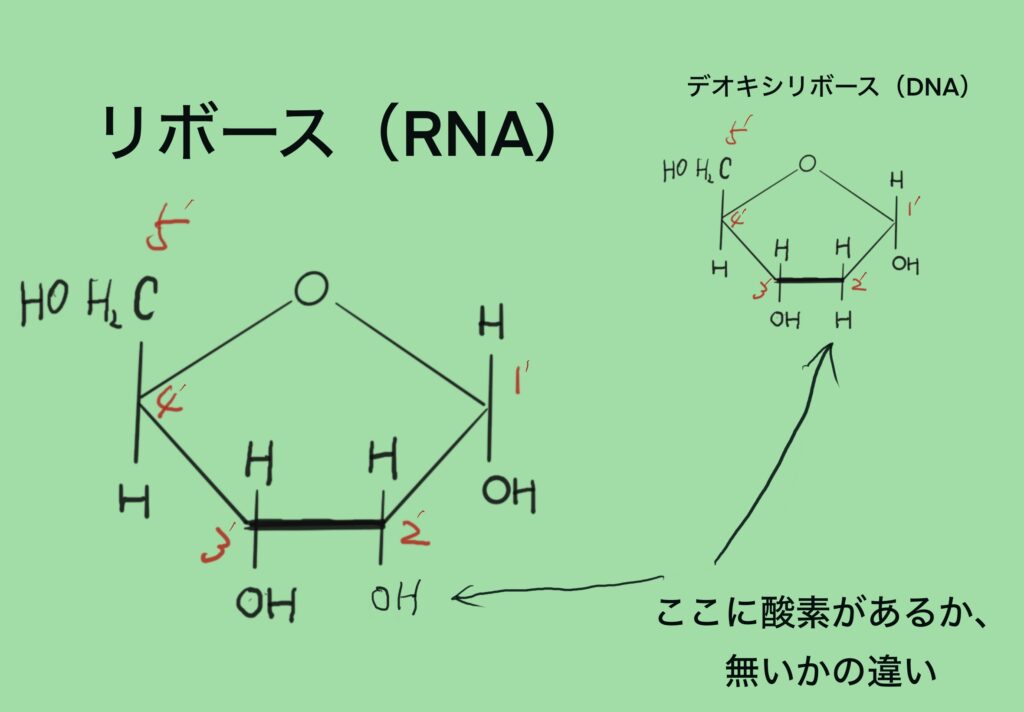
そしてそこにつく塩基ですが、DNAの4種類の塩基のうち、チミン(T)だけがウラシル(U)に入れ替わっています。
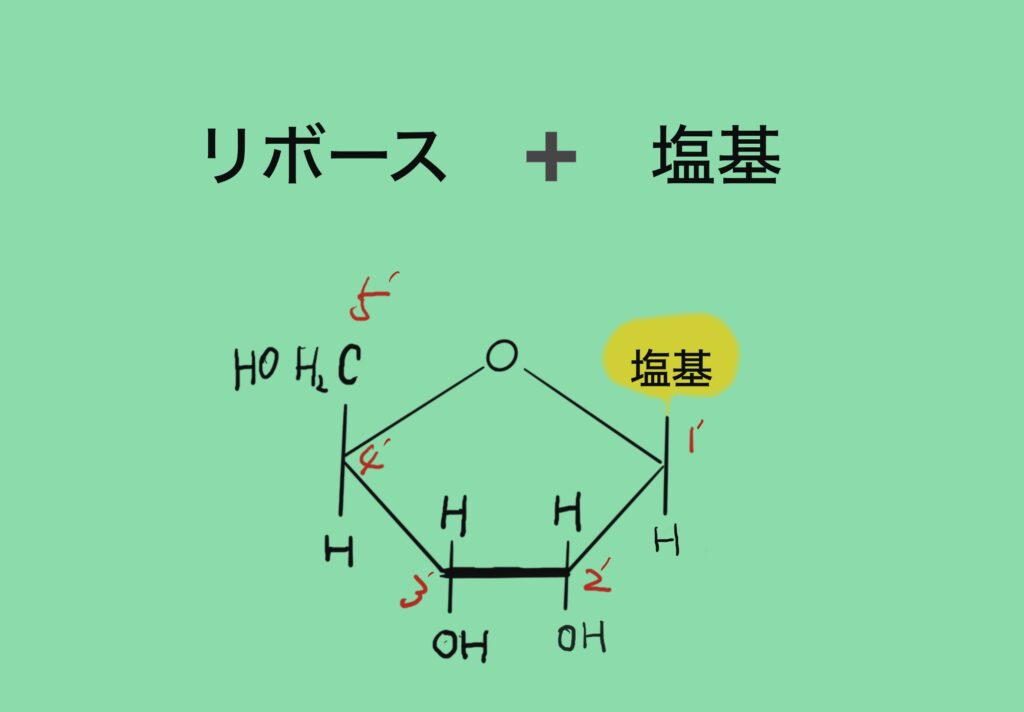

DNAと同じように、リン酸を挟みながら、どんどん結合して鎖状になってゆきます。
RNAにはいくつか種類があり、働きが違います。以下の記述の先取りになりますが、簡単に記述します。
mRNA(メッセンジャーRNA):タンパク質を作るための情報を運ぶ
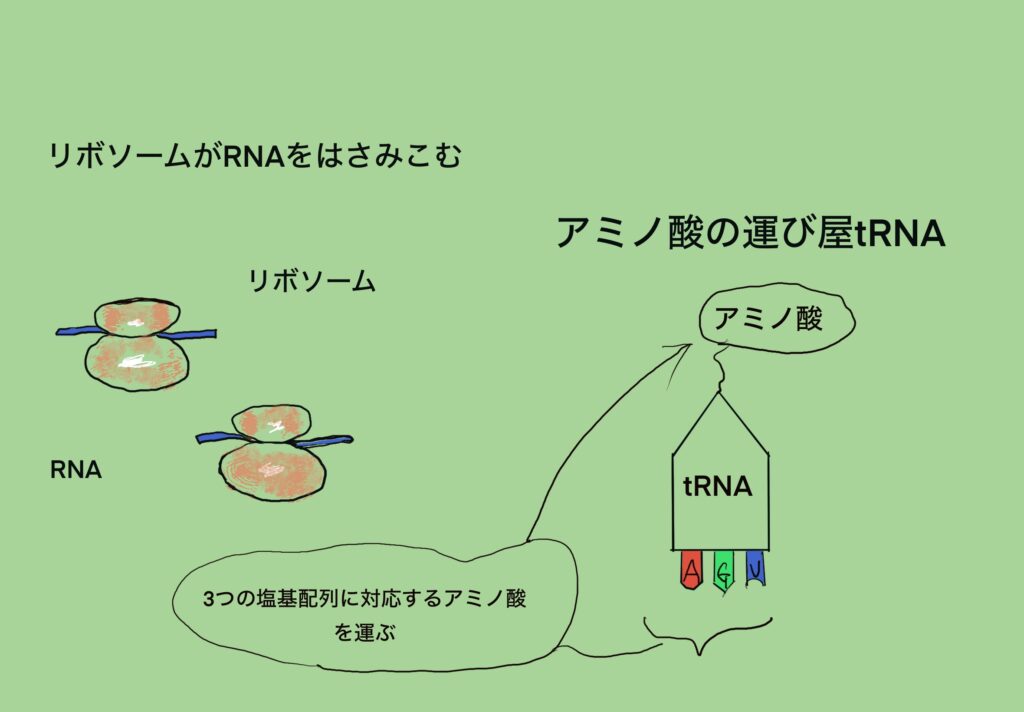
t RNA(トランスファーRNA):情報に対応したアミノ酸をリボソームに運ぶ
r RNA(リボソームRNA):タンパク質とともにリボソームを作り、タンパク質合成の中心で働く。
この他にも、遺伝子の働きを調整するRNAや、発現の調整をするRNAもあります。
5.10.4 遺伝情報の転写
DNAの遺伝情報の発現を見ていきます。DNAの二重螺旋が、一部ほどけます。
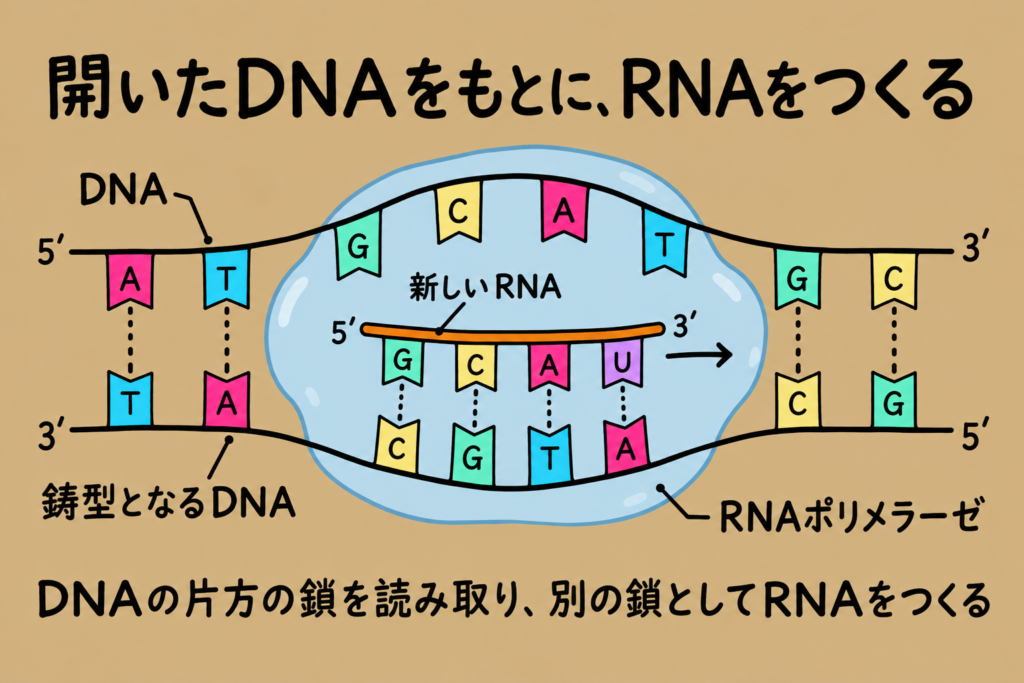
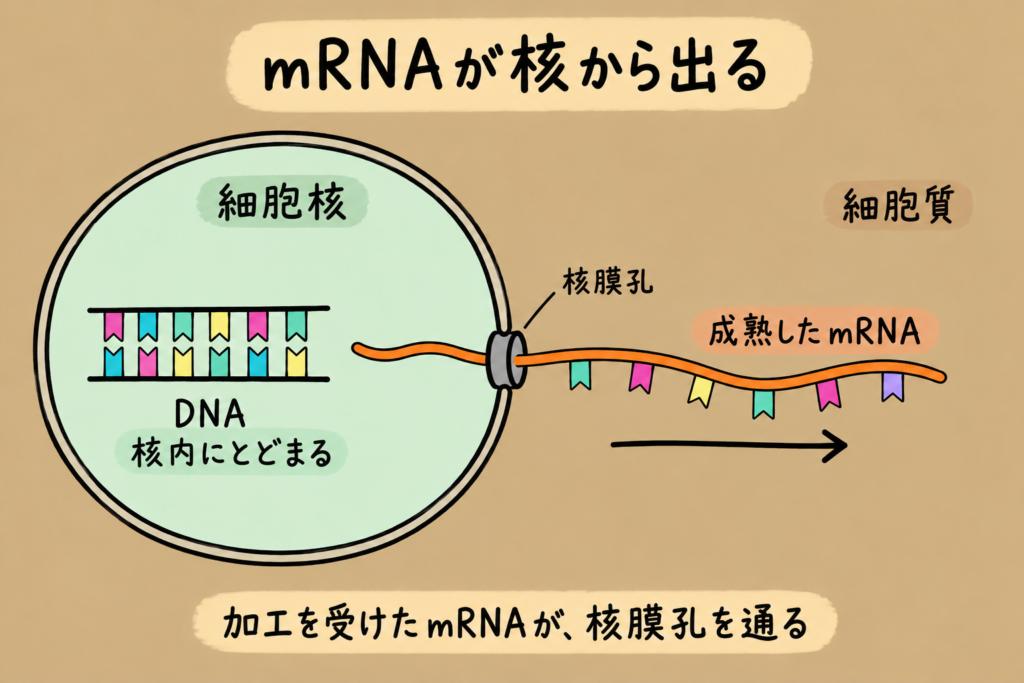
そこにRNAポリメラーゼという酵素の働きによって、RNAが作られていきます。一本鎖になったDNAの露出した塩基に対して、対応した塩基が来ます。DNAのアデニン(A)にはウラシル(U)をもったリボースが、DNAのグアニン(G)にはシトシン(C)をもったリボースがやってきて、つながります。作られたRNAはmRNA(メッセンジャーRNA)と呼ばれています。DNAは、大事な遺伝情報の中枢なので、染色体内(細胞核内)にとどまり、情報の一部をコピーしたmRNAが細胞核から、細胞質内に出ていきます。DNAの遺伝情報がRNAに写し取られます。この過程を「転写」と言います。
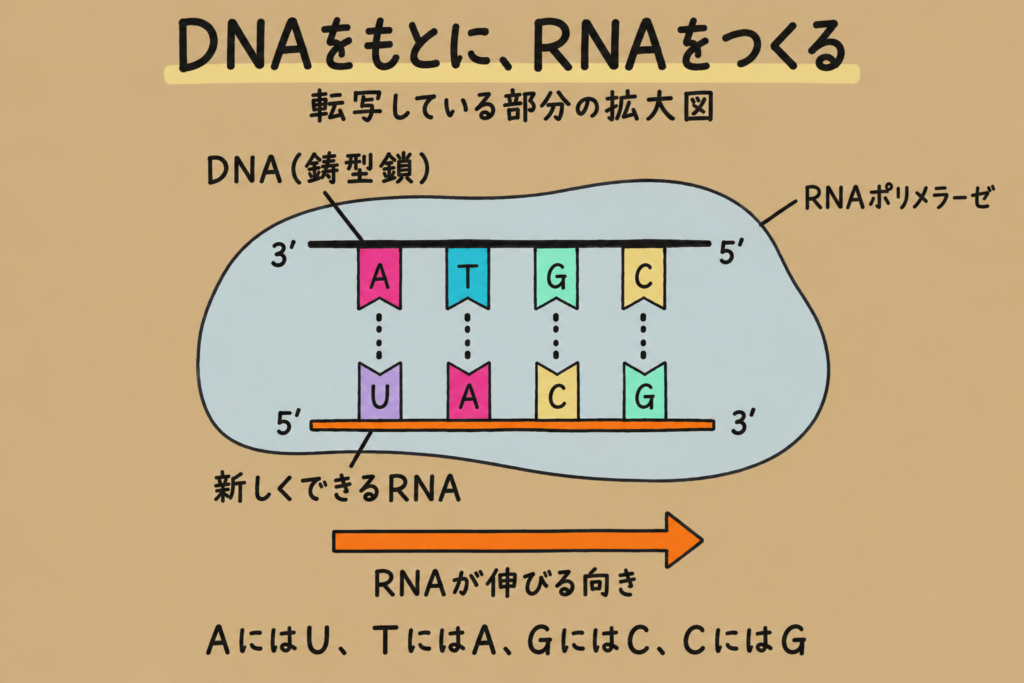
ヒトの核でタンパク質をコードする遺伝子を転写すると、まずmRNAの前駆体ができます。多くは、不要な区間を取り除いて必要な区間をつなぐ「スプライシング」や、端を整えるキャップ付加・ポリA付加などを受けて、成熟したmRNAになります。この加工の一部は、転写と並行して進みます。成熟したmRNAは核の外の細胞質へ出ていきます。
5.10.5 遺伝情報の翻訳
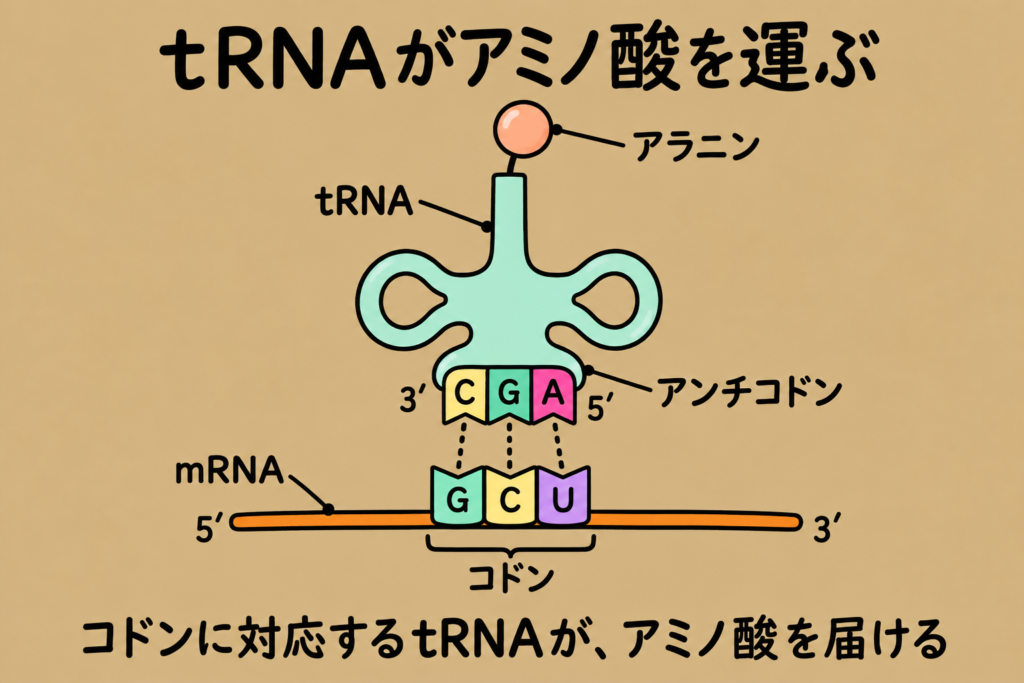
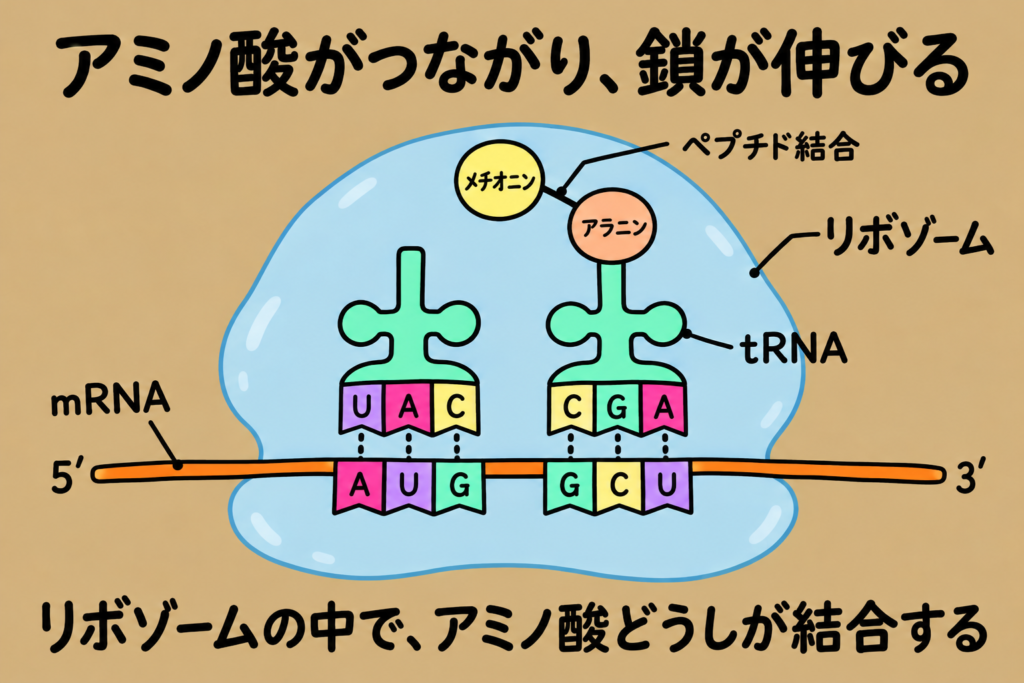
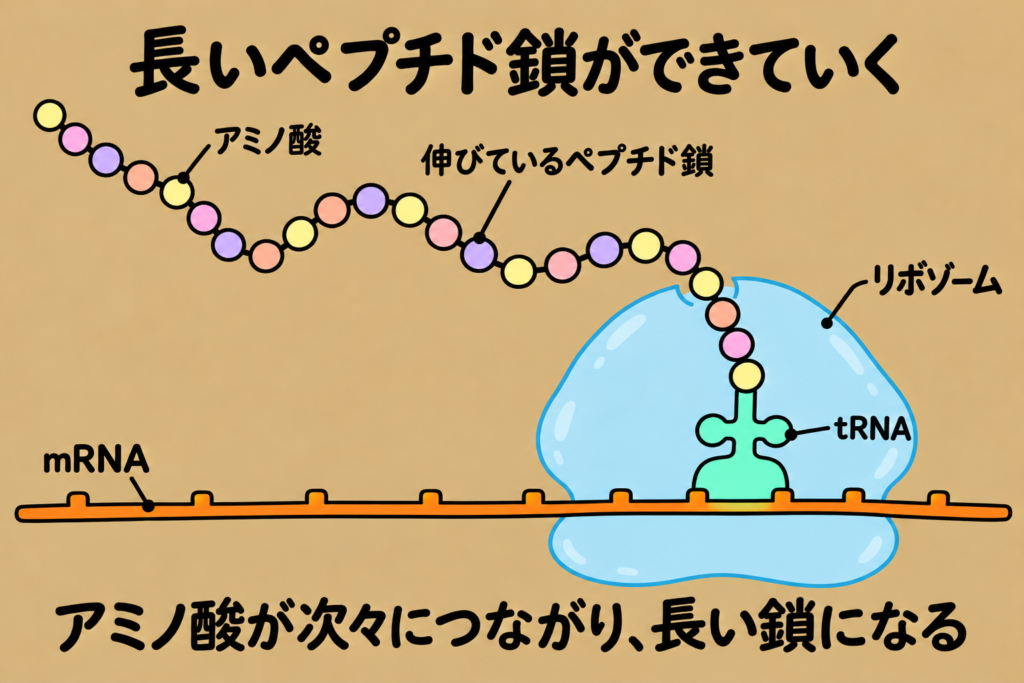
mRNAは、細胞質に出ていくと、リボゾームと結合します。リボソームはmRNAの情報を5′→3′の向きに、3塩基ずつ読んでいきます。この3塩基の組を「コドン」といいます。通常はAUGを開始コドンとして、読み始める位置が決まります。
tRNAには、コドンと対応して結びつく「アンチコドン」があります。tRNAがアミノ酸を運び、リボソームで隣り合うアミノ酸の間にペプチド結合ができます。こうして伸びるアミノ酸の鎖が「ポリペプチド鎖」です。鎖が折りたたまれ、必要な加工や組合せを経て、機能するタンパク質になります。この過程を翻訳と呼びます。
コドンと対応するアミノ酸が決まっており、以下の表のようになります。
4種類の塩基を3つ並べるので、コドンは4×4×4=64通りあります。標準的な遺伝暗号では、61通りが20種類のアミノ酸を指定し、3通りが翻訳の終わりを知らせます。同じアミノ酸に複数のコドンが対応する場合もあります。[4]
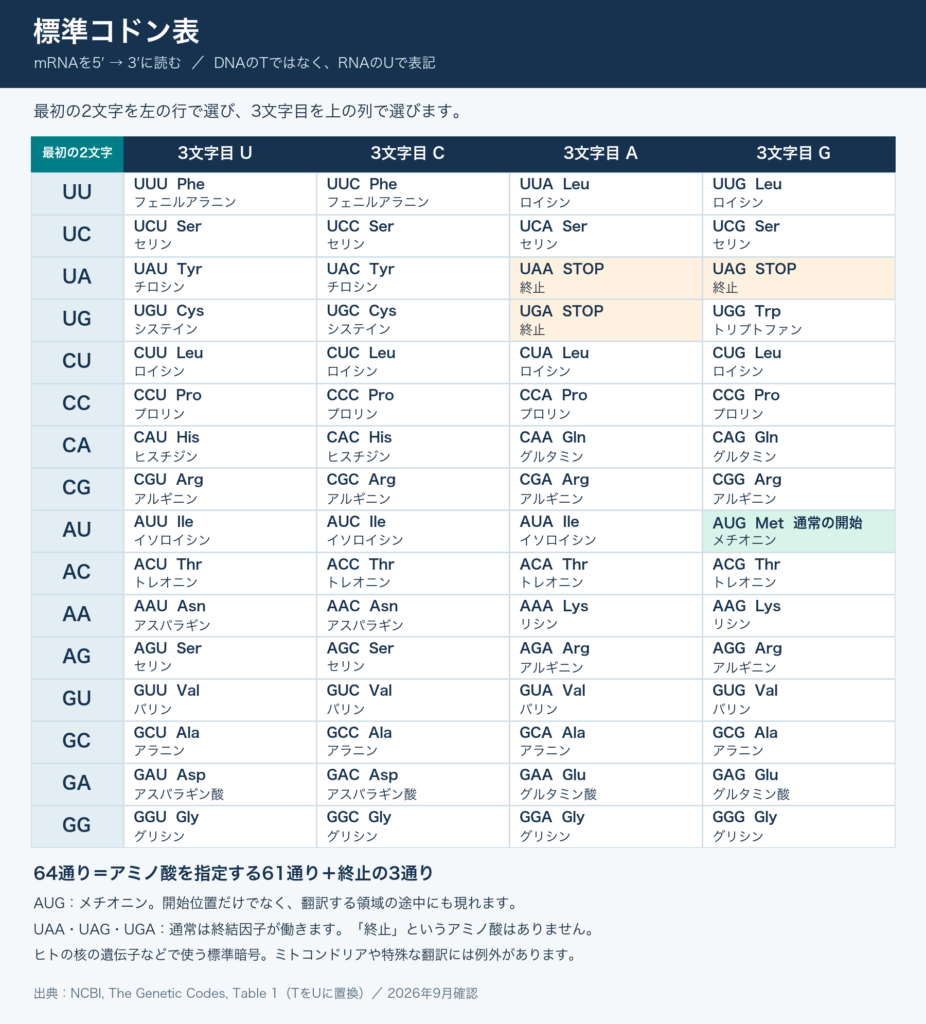
この表は、mRNAを5′→3′に読んだときの表です。DNAのTではなく、RNAのUを使っています。例えばAUGなら、最初の2文字「AU」の行と、3文字目「G」の列を見ます。メチオニン(Met)が見つかります。
AUGは通常、翻訳を始める合図になります。ただし、翻訳中の途中にあるAUGもメチオニンを指定するので、「AUGを見るたびに新しく翻訳が始まる」という意味ではありません。
終止コドンは「UAA・UAG・UGA」です。通常はアミノ酸を運ぶtRNAの代わりに終結因子が働き、できた鎖が切り離されます。「終止」というアミノ酸があるわけではありません。ミトコンドリアなどでは対応が一部異なるため、この表は「標準コドン表」としています。
5.10.6 遺伝情報の発現
私は、学生の時、DNAからタンパク質ができていく過程を知って、「これが遺伝の発現だ」と聞いて愕然とした記憶があります。この自然のコードには感動したのですが、「タンパク質が全てなの!?」という思いがありました。勉強ができたり、足が早いけど球技が苦手だったり、容姿が優れていたり・・・色んな遺伝があるけど、タンパク質で決まるの!?
タンパク質は確かに重要です。前の節に出てきた受容体、イオンチャネル、神経伝達物質を作ったり分解したりする酵素なども、タンパク質です。その種類や量、働く場所や時期が変われば、細胞や神経回路の働きにも影響します。
しかし、一つのタンパク質が一つの性格や能力をそのまま決めるわけではありません。遺伝子の発現を調節する仕組みが重要です。同じDNAを持つ細胞でも、神経細胞と筋肉細胞では全然違います。どの遺伝子を、いつ、どの程度働かせるかが重要なのです。環境との相互作用(発達過程、幼児期の体験など)も影響します。
5.10.7 エピジェネティクス 遺伝子の使われ方を考える
私が、この領域に希望を感じる理由
近年、精神医学でも注目されている研究領域に「エピジェネティクス」があります。私は、この領域を重視しています。遺伝子を持っていることと、その遺伝子がどのように働くかは、同じではない。そこに、臨床上の希望を感じるからです。
ただし、「環境を変えれば、遺伝の影響を自由に消せる」という話ではありません。まず仕組みを見てから、何が分かっていて、どこからが今後の研究なのかを考えてみましょう。
DNAの文字列を変えずに、遺伝子の使われ方を調整する
エピジェネティクスは、DNAの塩基配列を変えずに、遺伝子の働き方が調節される仕組みを研究する分野です。
ここで「DNAが変わらない」とだけ書くと、少し誤解が生じます。DNAそのものに化学的な目印が付くことはあります。変わらないのは、基本的にはA・T・G・Cという文字の並びです。その並びを書き換えなくても、どの部分を、いつ、どの程度読み取るかは変わり得るのです。
前の節で説明した「転写」を思い出してください。DNAの情報をRNAへ写し取るには、転写に関わる分子が、その場所に近づいて働く必要があります。その近づきやすさや、働く分子の集まり方を調整する仕組みがあるのです。
長いDNAは、ヒストンに巻きついている
細胞核の中で、DNAはむき出しの長い糸として置かれているわけではありません。「ヒストン」というタンパク質のまとまりに巻きついています。DNAがヒストンに巻きついた単位を「ヌクレオソーム」、DNAとタンパク質が組み合わさったものを「クロマチン」と呼びます。ヒストンは「糸巻き」のようですね。
クロマチンのまとまり方や、そこに付く化学的な目印は、遺伝子の読み取られやすさに関係します。「DNAの立体構造を変える」という説明も一面を表していますが、収納状態に加えて、目印を認識するタンパク質の働きも大切です。
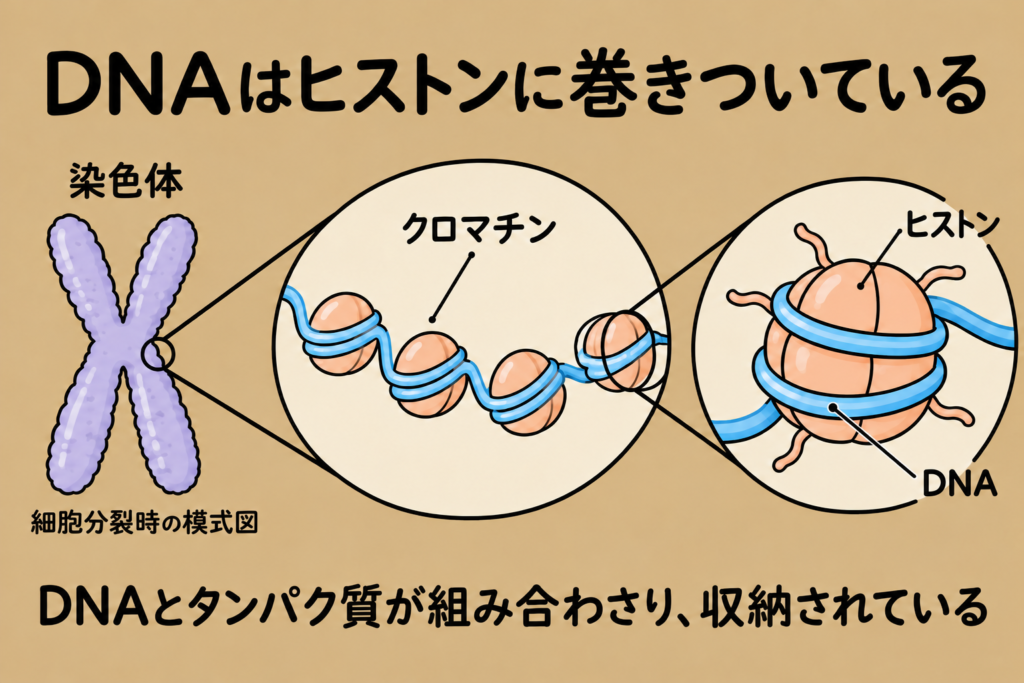
染色体を拡大して、DNAとヒストンの関係を示しました。左のX字形は細胞分裂時の模式図です。普段の細胞核で、いつもこの形をしているわけではありません。大きさや巻き方は簡略化しています。
DNAのメチル化――DNAに付く目印
代表的な仕組みの一つが「DNAのメチル化」です。
ヒトでは主に、DNA中のシトシンという塩基に、メチル基という小さな化学的な目印が付きます。これは、シトシンが別の塩基に置き換わることとは異なります。
遺伝子の転写の開始を調整する「プロモーター」付近では、DNAのメチル化が転写の抑制と結びつくことがよくあります。ただし、DNAのどこがメチル化されるかによって意味は変わるため、「メチル化したら必ず遺伝子がオフになる」とは言い切れません。
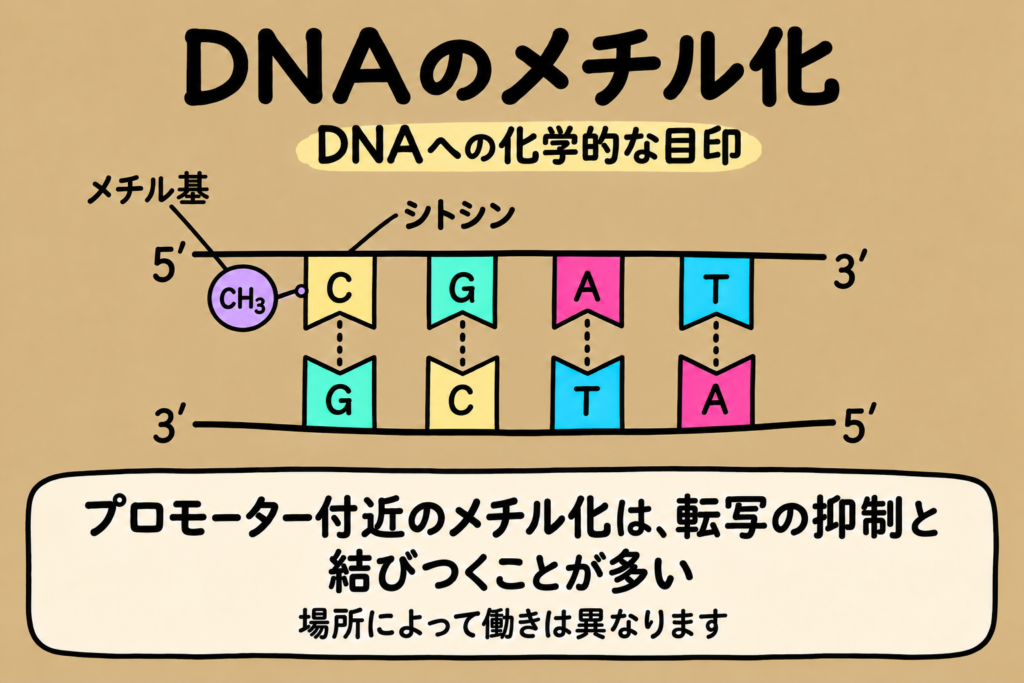
CH₃がメチル基です。DNAへの化学的な修飾を示しています。図の塩基配列は説明用の例で、実在の遺伝子のプロモーターを描いたものではありません。
ヒストンのアセチル化――DNAの周囲に付く目印
もう一つが、ヒストンへの修飾です。ここでは「アセチル化」を取り上げます。
ヒストンにアセチル基が付くと、DNAとの相互作用や、そこに集まるタンパク質の働きが変わります。一般に、ヒストンのアセチル化は、転写に関わる分子が近づきやすい、開いたクロマチンの状態と結びつきます。
ただし、一つの目印だけで、すべてが決まるわけではありません。修飾される場所や組み合わせ、細胞の状態によって作用は変わります。ヒストンにはメチル化などほかの修飾もあり、その働きは一律ではありません。
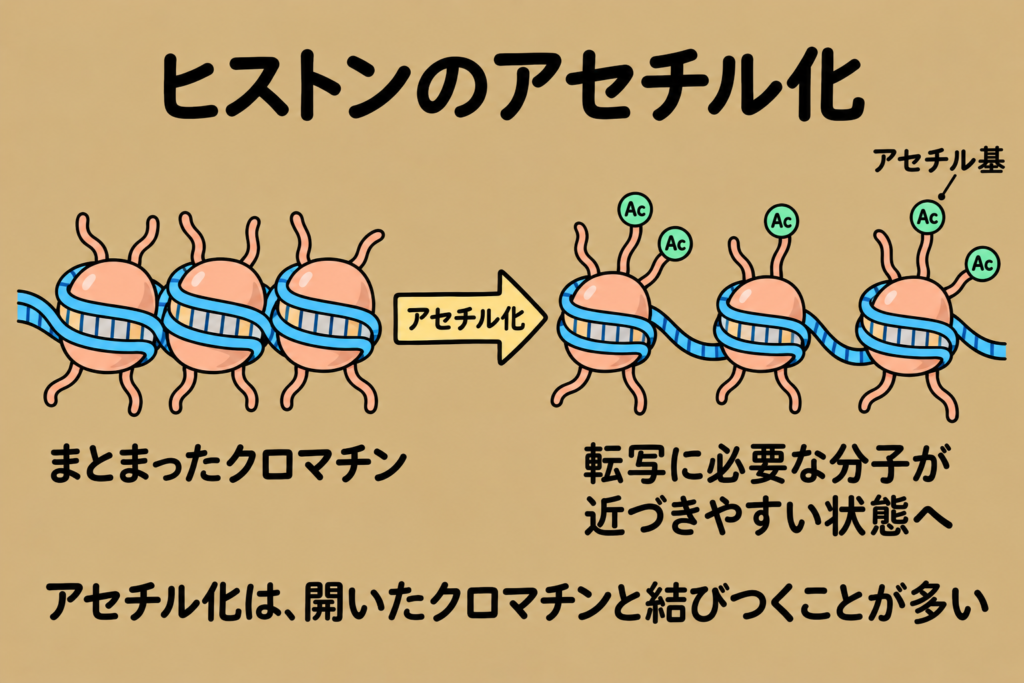
Acはアセチル基の略です。目印はDNAではなくヒストンに付いています。開いた状態でもDNAはヒストンに巻きついており、すべてほどけて裸になるわけではありません。図は一般的な傾向を簡略化したものです。
長いDNAに「旗」を立てるようなもの
こうした仕組みは、長いDNAやその周囲に、「このあたりは読み取りを抑える方向」「このあたりは読み取りを促す方向」という旗を立てる、とたとえると分かりやすいかもしれません。
実際には、旗が立つわけではなく、化学的な目印を認識するタンパク質などが働きます。そして、旗の種類だけでなく、立っている場所や、周囲の目印との組み合わせも大切です。
また、発現を増やすことがいつもよく、抑えることがいつも悪いわけではありません。細胞が必要な仕事をするには、使う遺伝子と、あまり使わない遺伝子を調整する必要があるのです。
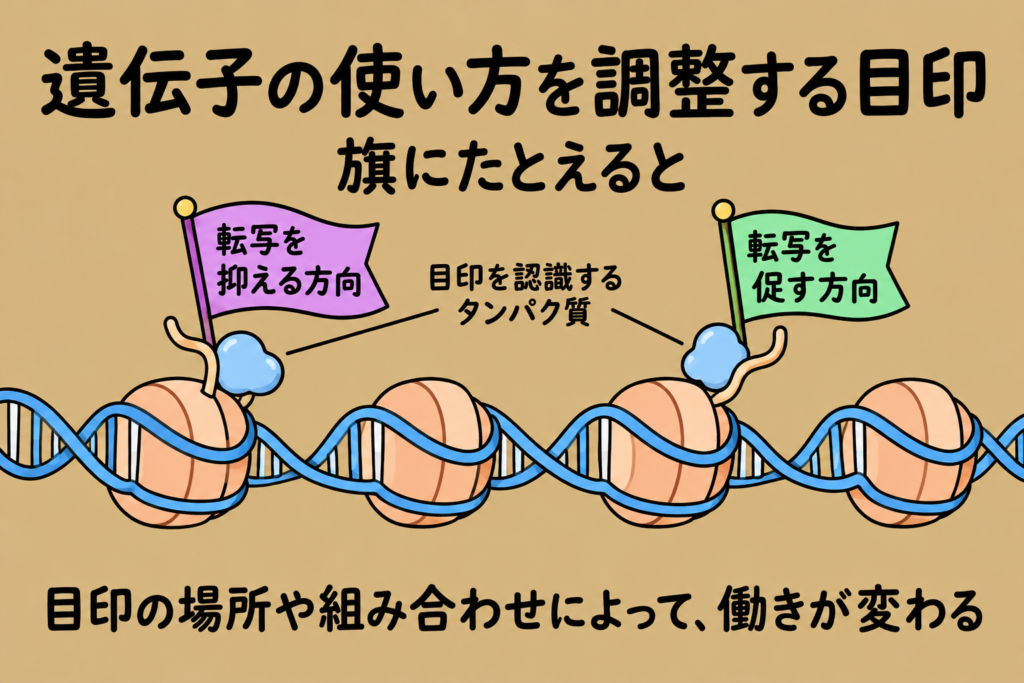
旗は理解のための比喩です。遺伝子を単純なオン・オフだけで制御するスイッチではなく、読み取られやすさの調整を表しています。
目印は、付くだけではない
私が特に興味を持つのは、こうした目印に、付ける反応だけでなく、外す方向の反応もあることです。
DNAのメチル化に対しては「脱メチル化」、ヒストンのアセチル化に対しては「脱アセチル化」があります。つまり、これらの修飾には、状態を変えられる仕組みが備わっています。
なお、DNAの脱メチル化は、単にメチル基を一つの酵素で取り外すだけではありません。複数の酵素による変換やDNA修復を介する経路などがあります。
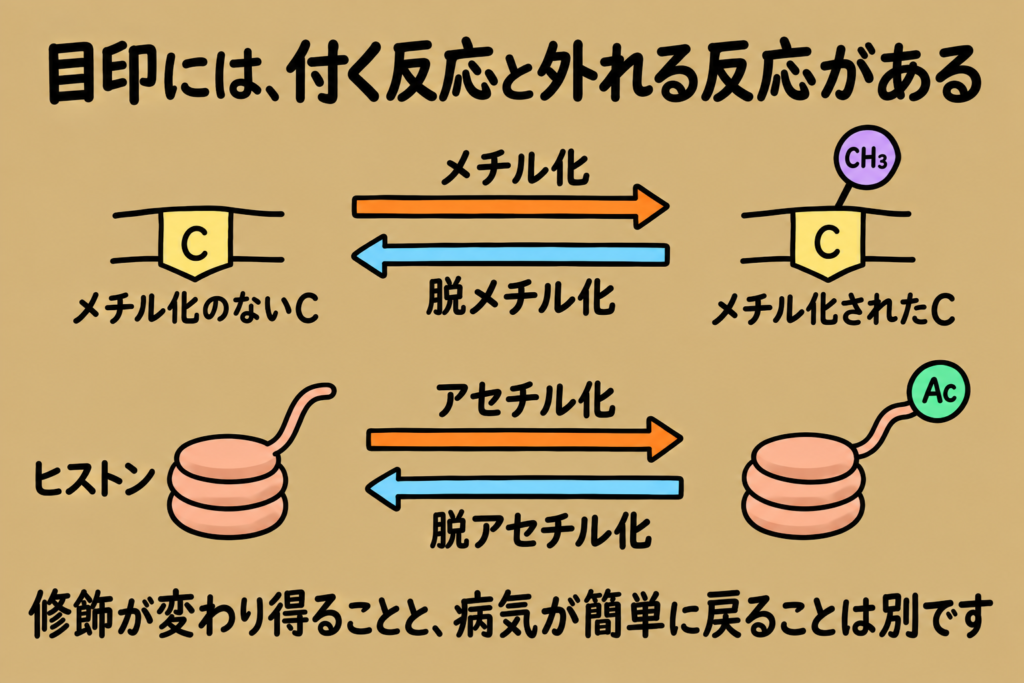
矢印は修飾状態が変わる方向を示し、一段階の化学反応を表すものではありません。目印が変わり得ることと、病気や発達の過程を簡単に巻き戻せることは別です。
ここには治療研究の可能性があります。ただし、「可逆的だから、生活を変えればすぐ元通りになる」「病気を確実に予防できる」という結論にはなりません。どの細胞の、どの場所を、いつ、どう変えることが役立つのかを、一つずつ調べる必要があります。
双生児研究が教えてくれること
遺伝と環境の関係を考える方法に、双生児研究があります。DNAの配列がほぼ同じ一卵性双生児と、通常のきょうだいと同程度に遺伝情報を共有する二卵性双生児などを比較します。
統合失調症については、一卵性双生児の一人が発症した場合に、もう一人にも発症がみられる「一致率」を、約50%とする報告がよく紹介されます。一方、デンマークの大規模な双生児研究では、一卵性で33%、二卵性で7%と報告されました。対象、診断基準、追跡期間、計算方法によって数値は変わるため、「必ず半数」と固定して理解するものではありません。
重要なのは、一卵性双生児でも一致率が100%ではないことです。遺伝的な要因は重要ですが、それだけで発症が決まるわけではありません。また、この数字は、親から子への発症確率を示したものではありません。
エピジェネティクスは、この違いを理解するための研究分野の一つです。一卵性双生児の間でもDNAのメチル化やヒストン修飾に違いがみられることが、実際に報告されています。
ただし、「双生児で発症が一致しないのは、すべてエピジェネティクスのため」とは言えません。胎内を含む環境の違い、発達過程のばらつきなど、さまざまな要因が関わり得ます。修飾の違いが見つかっても、発症の原因なのか、発症後の生活や治療などの影響なのかを区別する必要があります。血液で観察した変化が、そのまま脳の中の変化を表すとも限りません。
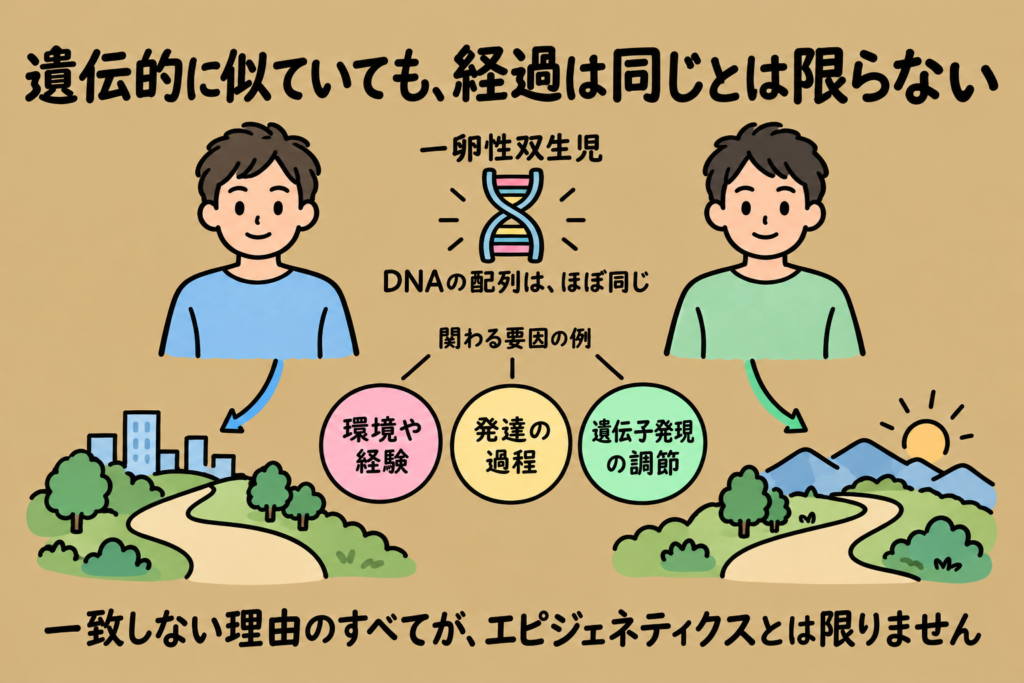
双生児の違いには複数の要因が関わり得ます。この図は、エピジェネティクスが個々の人の発症を説明し切るという意味ではありません。
子育てや治療について、どう希望を持つか
ご自身に病気があると、「子どもにも必ず同じ病気が起こるのでは」と心配される方がいます。しかし、統合失調症は、一つの遺伝子だけで決まる病気ではありません。家族に病気があることと、子どもの将来が決まっていることは、同じではないのです。
安心できる暮らし、必要な医療、困ったときに相談できる人や場所を整えることは、本人と家族の生活を支えるうえで大切です。私は、支援を受けながら生活を整えていくことには意味があると考えています。
ただし、それを「よい養育によってエピジェネティクスを変えれば、統合失調症を防げる」と説明することは、現時点ではできません。発症した場合も、親の育て方や本人の努力が足りなかったという意味ではありません。将来の発症に関する不安が強いときには、主治医や遺伝カウンセリングなどで、個別の状況を整理することが役立ちます。
「変わり得る」と「簡単に戻る」は違う。それでも、希望はある
同じ個体の神経細胞と筋肉の細胞は、基本的には同じDNAの配列を持ちながら、異なる働きをしています。この違いの維持にも、エピジェネティックな調節を含む仕組みが関わります。
しかし、神経細胞が、少し環境を変えただけで筋肉の細胞になるわけではありません。細胞の役割は、多くの仕組みが組み合わさって安定して保たれています。一部の目印を変えることと、細胞全体や脳の回路を元に戻すことは違います。
私は、エピジェネティクスに「何でも簡単に変えられる」という希望を託しているのではありません。遺伝情報がどのように使われ、その調節のどこに働きかけられるのかを知ることで、治療や支援の選択肢が増えていく。その可能性に、希望を感じています。
遺伝の影響を認めながらも、将来を一つに決めつけない。すでに役立つことが分かっている治療や支援を大切にしながら、新しい研究を見守っていきたいと思います。
5.11 精神疾患と遺伝――治療とこれからの人生を考える
ここまで、神経系ができる過程や、遺伝、エピジェネティクスについて説明してきました。それでは、精神疾患に遺伝が関わるということを、治療やこれからの人生を考えるうえで、どう受け止めたらよいのでしょうか。
5.11.1 遺伝の影響が大きくても、すべてが決まるわけではない
統合失調症は、遺伝的な要因の影響が大きい病気の一つです。しかし、遺伝子だけで発症が決まるわけではありません。
以前にも触れましたが、ほぼ同じ遺伝情報を持つ一卵性双生児でも、一人が統合失調症になったとき、もう一人も発症する割合は、およそ半分と説明されます。研究の方法や対象によって数字には幅がありますが、大事なのは、100%ではないということです。
なお、この「約50%」は双生児の発症の一致率であって、「病気の原因の半分が遺伝」という意味ではありませんし、親から子へ病気が伝わる確率でもありません。
受け継いだ遺伝情報に加えて、胎内を含む環境、発生の過程で生じる違い、その後の経験などが重なって、一人ひとりの状態が形づくられます。「遺伝か、環境か」の二者択一ではないのです。
5.11.2 生まれつきの要因があっても、治療に希望は持てる
エピジェネティクスのところでは、DNAの文字の並びが同じでも、その情報の使われ方は変わることを説明しました。こうした調節の一部は変化し得ます。もちろん「治療ですべて元に戻せる」とまではいえませんが、希望は持てると思います。
ここで伝えたいのは、生まれつきの要因が関わっているからといって、症状や生活の状態まで一生変わらないわけではない、ということです。遺伝情報そのものを変えなくても、薬物療法、心理社会的な支援、暮らしの調整などを通して、症状を和らげ、生活を立て直していくことはできます。
回復の道筋は人によって違います。症状が落ち着くことに加えて、人との関わりや、自分が大切にしたい生活を取り戻していくことも、治療の大事な目標です。
医学や支援の方法も進歩を重ねています。将来の治療効果を約束することはできませんが、今ある治療と支援を使いながら、これからの可能性に希望を持つことはできます。
5.11.3 結婚や妊娠・出産を、遺伝の不安だけで諦めなくてよい
統合失調症のある方から、結婚はもちろん、妊娠や出産についても相談を受けます。「子どもに遺伝するのではないか」と心配されるのは、自然なことだと思います。
実際に、親の一方に統合失調症がある場合、子どもが将来、統合失調症を発症する可能性は、一般より高くなります。しかし、子どもも必ず発症するわけではなく、多くは発症しません。
そして、仮に子どもが将来発症したとしても、その子の人生がそこで閉ざされるわけではありません。今、あなた自身が、病気と付き合いながら結婚や子どもを持つことを考えている。そのことも、病気があっても人生の可能性が残されていることを示す、一つの経験ではないでしょうか。
もちろん、親子で経過が同じになるとは限りませんし、誰もが結婚や出産を目指す必要もありません。それぞれが望む人生を考えてよいのです。
5.11.4 「育てられるか」を、一人で背負わずに考える
遺伝の確率に加えて、具体的に考えたいのは、安心して子どもを迎え、育てていくために、どんな支えを用意できるかということです。
体調が安定している時期を選べるか。妊娠中の治療をどうするか。出産後に睡眠や休息を確保できるか。調子を崩したとき、誰が育児を代わり、どこに相談できるか。こうしたことを、パートナーや家族、精神科と産科の医療者、地域の支援者と一緒に考えていきます。
妊娠中の薬については、薬の影響と、治療を変えたり中断したりすることで病状が悪化する可能性の両方を検討します。自己判断で薬を中止せず、できれば妊娠前から相談してください。
これは、病気のある人だけに「親になる資格」を問う話ではありません。子育てには誰にでも支えが必要です。支えが足りないなら、本人の努力だけに任せず、利用できる制度やサービスも含めて整えていくことが大切です。準備したとおりにいかないことがあっても、それを親の責任だけにすることはできません。
子どもを持つことも、持たないことも、ご本人たちの大切な選択です。遺伝への不安だけで可能性を閉ざさず、必要な情報と支援を得ながら、これからの人生を考えていきましょう。
